

Les oligosaccharides du lait : diversité structurale, variabilité et potentiel d’utilisation pour la préservation de la santé des animaux d’élevage
Dans les élevages, au moment du sevrage, les troubles digestifs compromettent les performances des animaux et conduisent à une utilisation d’antibiotiques. Dans un contexte croissant de résistance aux antibiotiques et de pression économique, il est nécessaire de définir de nouvelles stratégies nutritionnelles préventives. L’utilisation des oligosaccharides du lait, ayant des effets bénéfiques sur la barrière intestinale, pourrait être un levier particulièrement prometteur. Leur action étant fonction de leur structure chimique, mieux comprendre leur diversité est une première étape.
Introduction
Le lait constitue la source exclusive de nutriments pour les nouveau-nés mammifères. Au-delà de ses composés nutritionnels essentiels, le lait contient également des composés bioactifs non nutritionnels, capables d’influencer positivement divers processus physiologiques chez le jeune. Parmi ces composés bioactifs, les oligosaccharides du lait (MOs pour Milk Oligosaccharides), suscitent aujourd’hui un intérêt croissant en recherche, tant chez l’homme que chez les animaux d’élevage. Ces oligosaccharides, non digestibles par les enzymes de l’hôte, exercent plusieurs fonctions clés au sein du tractus digestif : ils i) favorisent le développement sélectif de bactéries bénéfiques, ii) limitent l’adhésion des pathogènes à la muqueuse intestinale, iii) renforcent la barrière épithéliale et iv) modulent l’immunité intestinale (Coppa et al., 2006 ; Marcobal et al., 2011 ; Manthey et al., 2014 ; Noll et al., 2016 ; Xiao et al., 2019 ; Salli et al., 2021). Les rôles des oligosaccharides du lait dépendent de leur structure chimique, laquelle conditionne leurs interactions avec le microbiote, les cellules épithéliales et immunitaires (Kijner et al., 2022 ; Boll et al., 2024).
À ce jour, près de 800 structures d’oligosaccharides du lait ont été identifiées (Durham et al., 2023 ; Jin et al., 2023). Le profil de composition en oligosaccharide des laits varie fortement entre espèces, mais aussi entre individus d’une même espèce et au sein d’un même individu (stade de lactation, alimentation, parité) (Durham et al., 2023). L’objectif de cette revue est de décrire la diversité de structure chimique des oligosaccharides du lait. Il s’agit également de mieux comprendre l’origine de la diversité de composition en oligosaccharides des laits des animaux d’élevage. Après une description de la structure chimique et des principaux types d’oligosaccharides des laits, nous aborderons les facteurs de variation inter- et intra-espèce, puis leurs fonctions biologiques et enfin les perspectives d’application de ces composés en élevage.
1. La diversité de structures des oligosaccharides du lait
1.1. La structure des oligosaccharides du lait
Les oligosaccharides sont des glucides complexes constitués de deux à vingt sucres simples, appelés monosaccharides, reliés entre eux par des liaisons osidiques (International Union of Pure and Applied Chemistry (IUPAC), 2006). Dans le lait, deux grandes familles d’oligosaccharides sont présentes : les oligosaccharides glycoconjugués, dans lesquels au moins un monosaccharide est lié à une molécule non glucidique (comme une protéine ou un lipide), et les oligosaccharides libres, qui ne sont attachés à aucune structure non glucidique. Nous centrons notre revue sur la fraction des oligosaccharides libres du lait.
Les MOs sont formés de cinq monosaccharides majoritaires : le glucose (Glc), le galactose (Gal), le N-acétylglucosamine (GlcNAc), le fucose (Fuc) et l’acide N-acétylneuraminique (Neu5Ac). Certains MOs contiennent également le N-acétylgalactosamine (GalNAc), et l’acide N-glycolylneuraminique (Neu5Gc) (figure 1A). Ce dernier, présent chez la plupart des mammifères, est cependant absent chez l’homme (Chen, 2015). Ces monosaccharides sont liés entre eux par des liaisons osidiques selon deux conformations : α ou β (figure 1B). La description de la liaison indique également les carbones constitutifs des monosaccharides impliqués dans la liaison (encadré 1).
La majorité des MOs partagent une structure de base commune composée d’un glucose lié à un galactose par une liaison β1-4, formant ainsi une molécule de lactose (Gal(β1-4)Glc), située à la partie réductrice de la molécule (figure 1C). Dans certains cas, le glucose peut être remplacé par un N-acétylglucosamine (GlcNAc). À partir du lactose, l’élongation osidique par la fixation d’un disaccharide composé de galactose et N-acétylglucosamine selon une liaison β1-3 (structure para) ou β1-6 (structure iso), conduit à la production de deux motifs : i) lacto-N-biose lorsque la liaison est de type β1-3 (Gal(β1-3)GlcNAc), les MOs sont dits de type I ou ii) N-acétyllactosamine lorsque la liaison est de type β1-4 (Gal(β1-4)GlcNAc), les MOs sont dits de type II (figure 1C). Ces disaccharides peuvent être répétés plusieurs fois, les unités étant reliées entre elles par des liaisons β1-3, donnant lieu à une structure linéaire également appelée para-MO, ou des liaisons β1-6 produisant une structure branchée, appelée iso-MO (Bode, 2012) (figure 1 C, D, E). Il est important de noter que le lacto-N-biose ne se trouve qu’à l’extrémité non réductrice de la molécule, terminant ainsi l’élongation, tandis que le N-acétyllactosamine peut être interne à la molécule ou la terminer (Chen, 2015).
Cette chaîne principale des MOs peut être modifiée par l’ajout d’une ou plusieurs molécules de fucose liées en α1-2, α1-3 ou α1-4 et/ou une ou plusieurs molécules d’acide N-acétylneuraminique liées en α2-3 ou α2-6 (Bode, 2012) (figure 1 C, D, E). La diversité remarquable des structures chimiques des MOs s’explique par la nature et le nombre de monosaccharides constitutifs ainsi que la présence de différents types de liaisons osidiques.
A) Monosaccharides entrant dans la composition des oligosaccharides du lait (les monosaccharides sont symbolisés selon la nomenclature SNFG (Symbol Nomenclature for Glycans), voir encadré 1) (Varki et al., 2015). B) Schéma des liaisons osidiques α et β. C) Structure des oligosaccharides du lait. La plupart des molécules commencent par une molécule de lactose, qui subit une élongation, selon deux types de liaisons possibles (β1-3 pour les structures para ou β1-6 pour les structures iso), par la fixation d'un disaccharide. Les monosaccharides de ces disaccharides peuvent être liés selon deux types de liaisons (β1-3 donnant lieu au motif lacto-N-biose ou β1-4 donnant lieu au motif N-acétyllactosamine). Ce disaccharide peut être répété de 0 à 10 fois. Cette chaîne principale peut être modifiée par l’ajout d’une ou plusieurs molécules de fucose et/ou d’une ou plusieurs molécules d’acide sialique (Neu5Ac et/ou Neu5Gc). D) Exemple d’un oligosaccharide du lait en structure para, dont la fucosylation ou la sialylation de la chaîne principale donne lieu à deux autres molécules. E) Exemple d’un oligosaccharide du lait en structure iso, dont la fucosylation ou la fucosylation combinée à la sialylation de la chaîne principale donne lieu à deux autres molécules. Figure adaptée de Bode & Jantscher-Krenn (2012).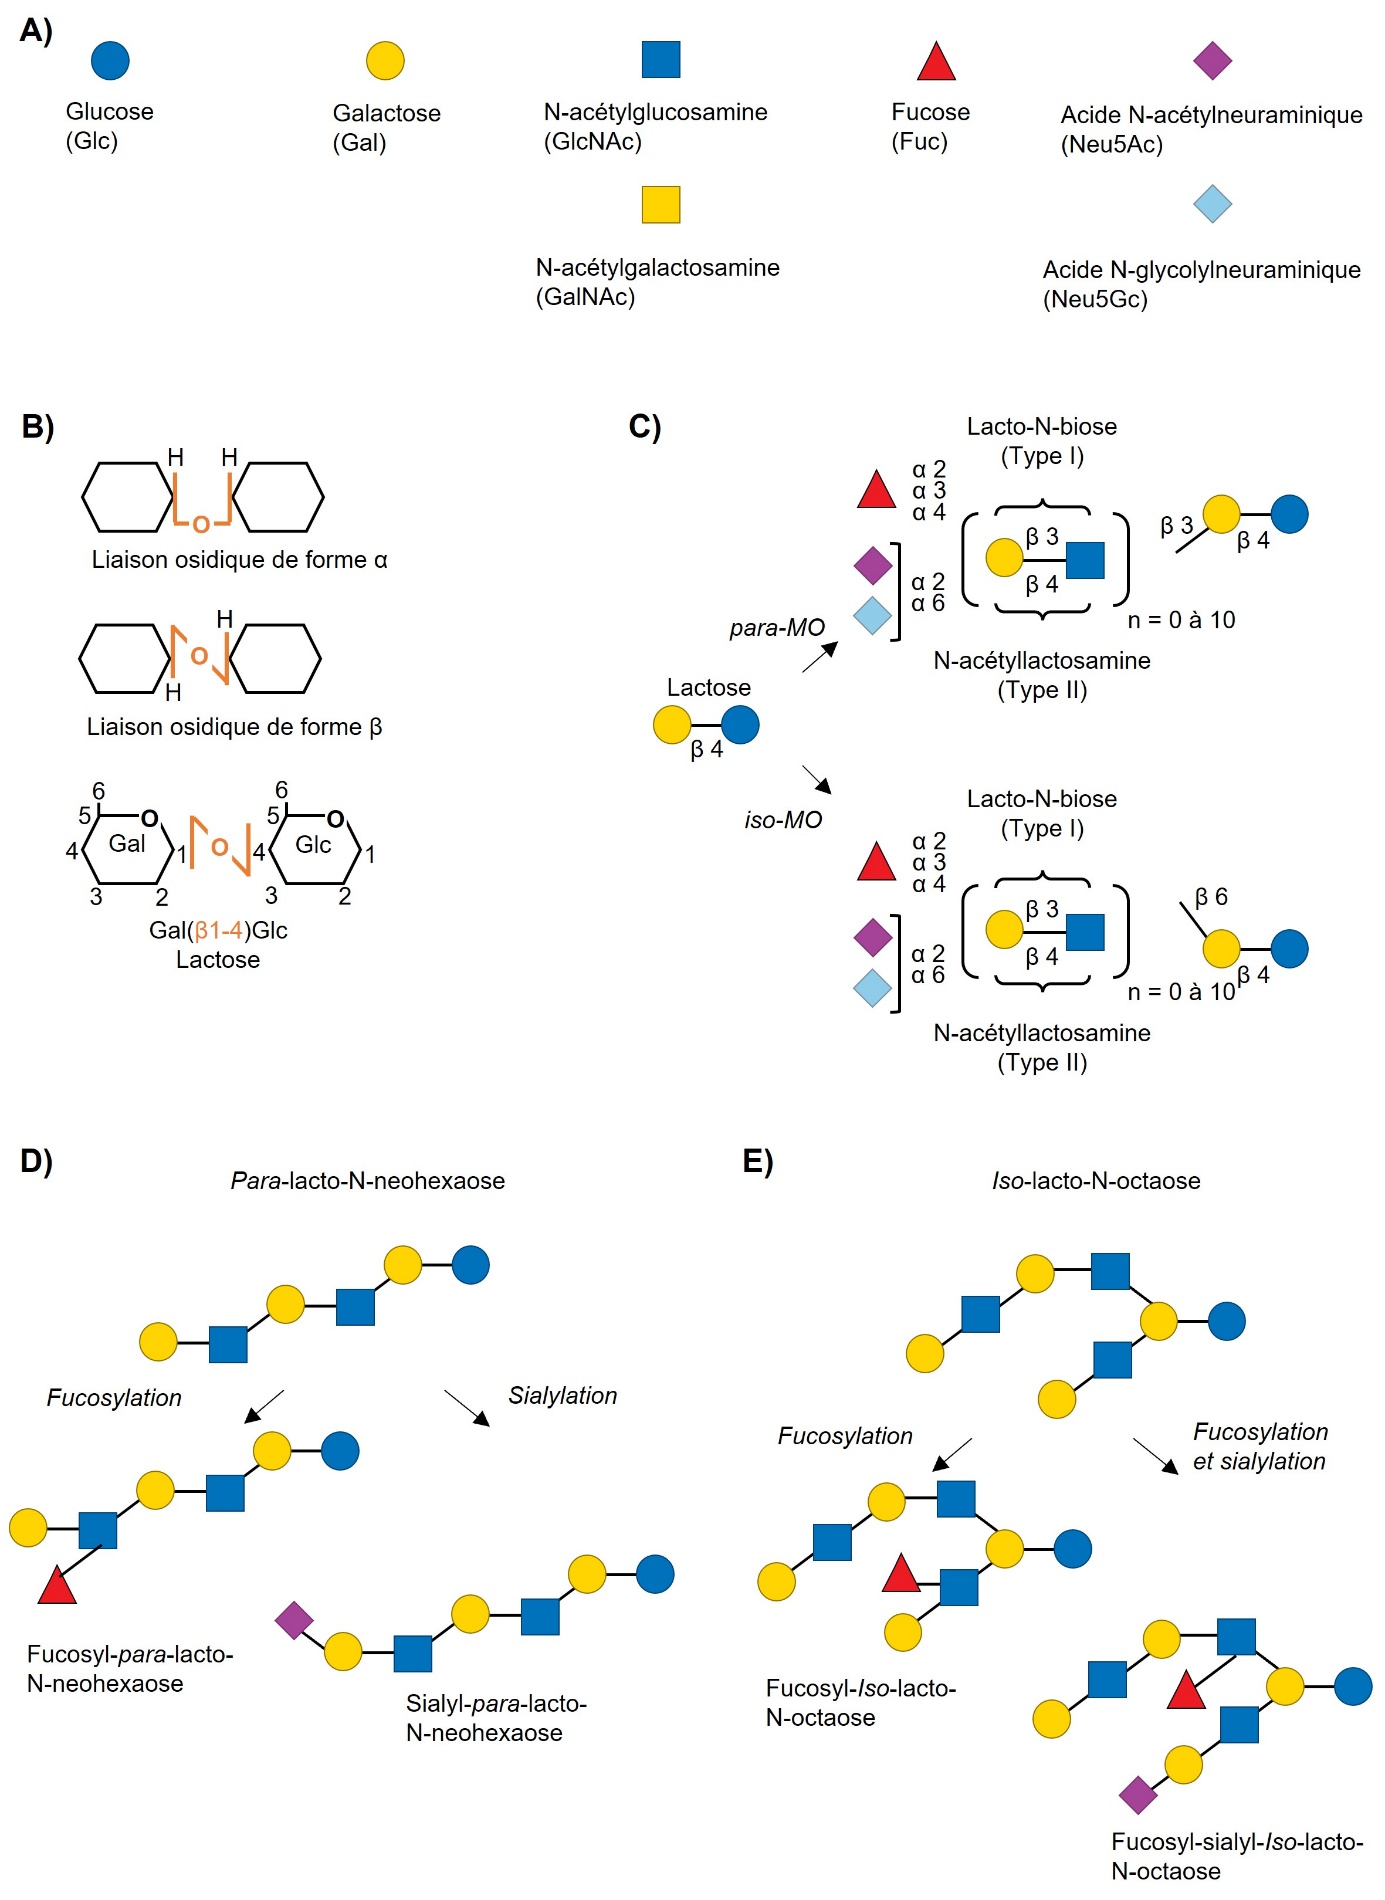
Figure 1 : Composition des oligosaccharides du lait.
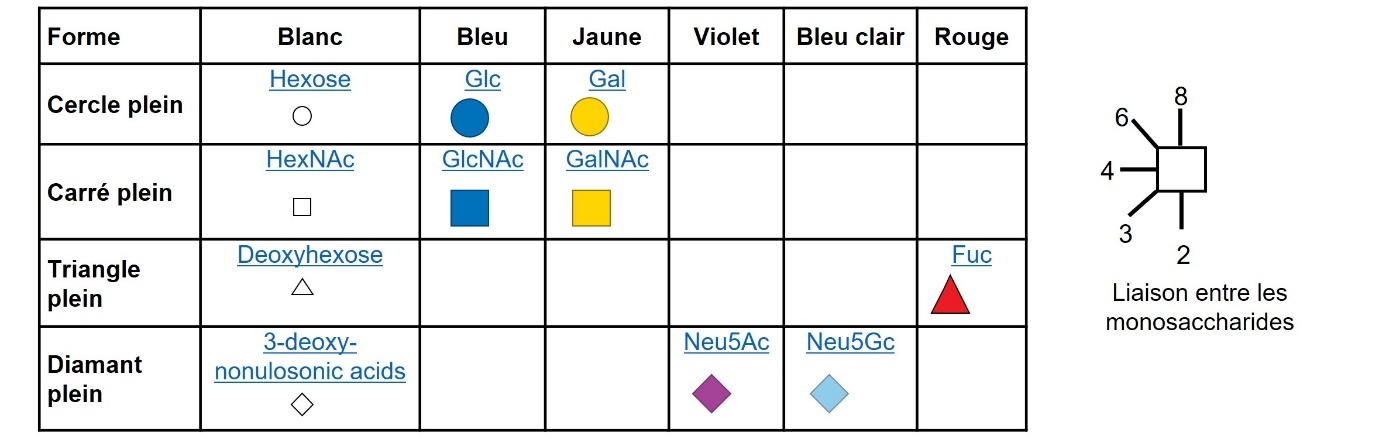
La nomenclature SNFG (Symbol Nomenclature for Glycans (Varki et al., 2015)) constitue aujourd’hui la représentation graphique de référence pour illustrer la composition en monosaccharides des oligosaccharides du lait. Cette nomenclature visuelle standardisée associe une forme et une couleur spécifiques à chaque monosaccharide. Neu5Ac et Neu5Gc sont des acides sialiques appartenant à la famille des 3-deoxy-nonulosonic acides. Les liaisons osidiques sont figurées sous forme de traits orientés, et des conventions graphiques indiquent les incertitudes sur la structure, comme l’utilisation de formes blanches lorsque seul le type de monosaccharides est connu, ou de crochets lorsque la position exacte d’un groupement n’est pas déterminée (Varki et al., 2015).
Le respect d’une nomenclature homogène est essentiel pour comparer la composition en MOs entre études. La nomenclature officielle de l’IUPAC (McNaught, 1996) définit les conventions permettant de nommer précisément les oligosaccharides. Cependant, plusieurs systèmes coexistent dans la littérature. Nous avons produit un thésaurus, qui associe les synonymes des oligosaccharides du lait avec leurs caractéristiques structurelles et chimiques (Rumeau et al., 2024). L’exemple du 2’-fucosyllactose illustre les synonymes couramment rencontrés pour nommer cette molécule : i) Forme étendue (systématique) où chaque monosaccharide est nommé en toutes lettres, précédé de sa forme anomérique, avec indication explicite des liaisons : α-L-fucosyl-(1→2)-β-D-galactosyl-(1→4)-β-D-glucose ; ii) Forme étendue abrégée identique à la forme étendue mais avec abréviations : α-L-Fuc-(1→2)-β-D-Gal-(1→4)-β-D-Glc ; iii) Forme condensée compacte et lisible : Fuc(α1-2)Gal(β1-4)Glc ; iv) Nom trivial : 2’-fucosyllactose ; v) Nom trivial abrégé : 2’-FL ; vi) Désignations structurales fondées sur la composition indiquant le nombre de chaque monosaccharide : 2_0_1_0_0 (ici le 2’-FL se compose de deux hexoses (glucose ou galactose), zéro N-acétylhexosamine (N-acétylglucosamine ou N-acétylgalactosamine), un fucose, zéro acide N-acetylneuraminique et zéro acide N-glycolylneuraminique).
L’absence de consensus dans la communauté conduit aujourd’hui à une coexistence de plusieurs usages. Pour les structures sans nom trivial, récemment découvertes, les auteurs recourent à des systèmes intégrant la nature chimique (neutre ou acide si la molécule contient au moins un acide sialique), la composition en monosaccharides ou parfois uniquement un identifiant numérique. À titre d’exemple N4120b correspond à un oligosaccharide neutre du lait contenant quatre hexoses, un fucose et deux N-acétylglucosamines.
1.2. Classification des oligosaccharides du lait
En fonction de leur composition en monosaccharides, les MOs sont généralement répartis dans deux catégories :
i) Les oligosaccharides acides du lait, molécules chargées négativement contenant au moins un résidu chargé négativement (-COOH) Neu5Ac et/ou Neu5Gc. Les oligosaccharides acides du lait sont également nommés oligosaccharides sialylés.
ii) Les oligosaccharides neutres du lait, molécules qui ne contiennent pas les résidus Neu5Ac et Neu5Gc. Ces groupes sont divisés en sous-groupes, selon la présence d’une ou plusieurs unités de fucose : neutre fucosylé et acide fucosylé (figure 2).
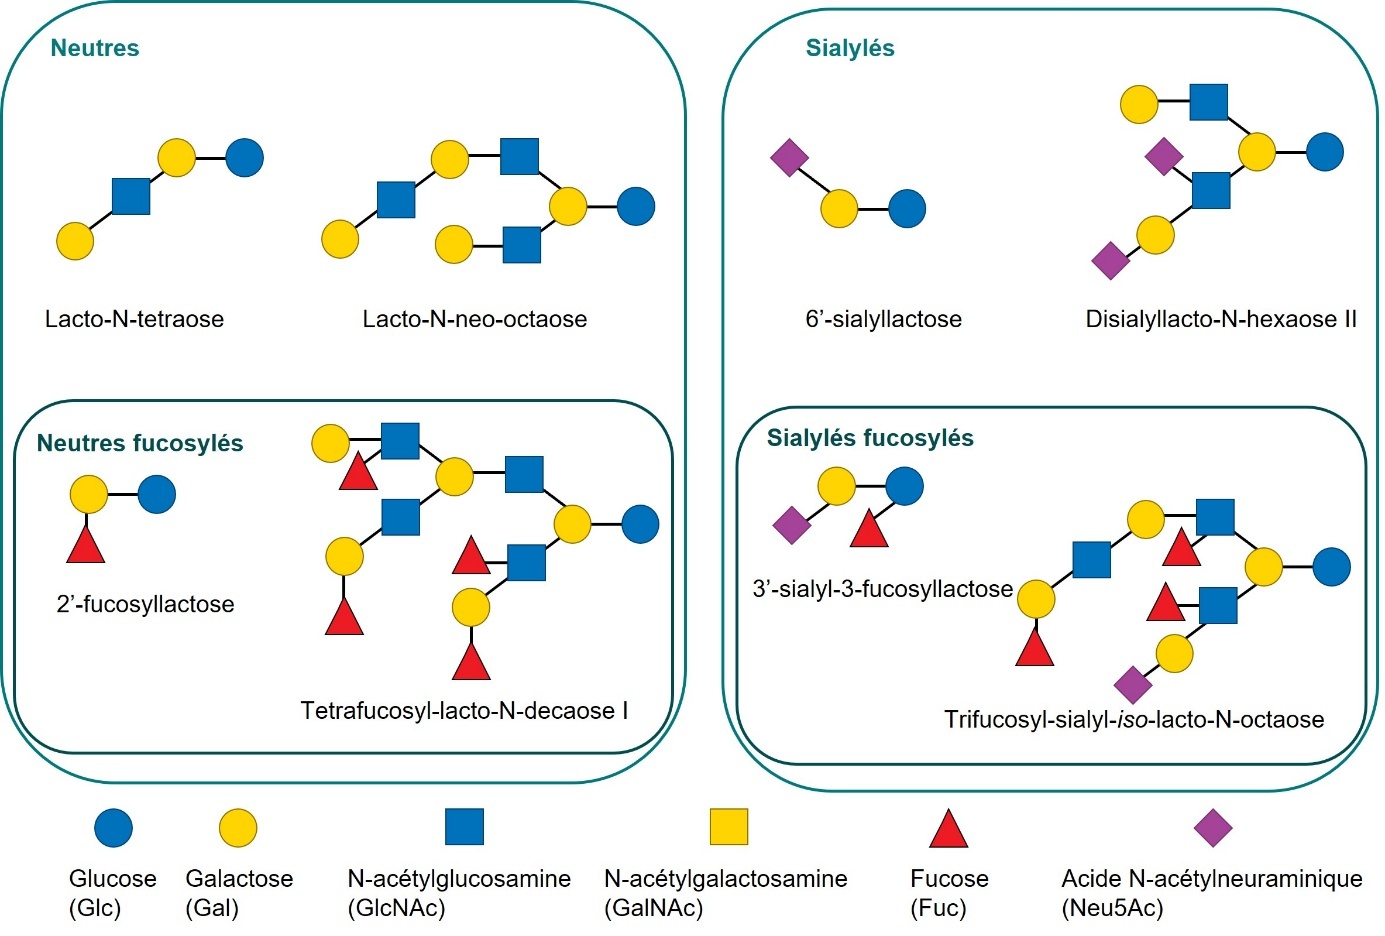
Figure 2 : Catégories des oligosaccharides du lait en fonction de leur composition en monosaccharides.
2. Patron de diversité des oligosaccharides du lait chez les animaux d'élevage
La composition en MOs, tant en termes de structures chimiques que de concentrations, varie fortement selon les espèces de mammifères mais aussi entre individus d’une même espèce et au cours de la lactation et de la parité. Les valeurs rapportées dans la littérature concernent le plus souvent les proportions relatives des structures identifiées. La quantification absolue des MOs reste peu accessible en routine (Durham et al., 2023), toutefois de nouvelles méthodes d’identification et de quantification sont désormais disponibles (Le Gall et al., 2025).
2.1. Variabilité inter-espèces
De fortes différences existent entre le lait humain et celui des animaux d’élevage. À ce jour, plus de 350 structures de MOs ont été identifiées dans le lait humain, contre 143 chez les bovins, 166 chez les porcs, 189 chez les caprins ou encore 66 chez les ovins selon la base de données MilkOligoDB construite à partir des données de la littérature (Durham et al., 2023). Chez le lapin, espèce dont les MOs ont été très peu étudiés, plus de 49 structures ont été découvertes (Combes et al., 2025). La concentration totale en MOs suit la même tendance, le lait humain mature en contient jusqu’à 12 à 13 g.L-1 pour les femmes de phénotype « sécréteur » (phénotype majoritaire, voir paragraphe 2.2.a) (Urashima et al., 2009 ; Thurl et al., 2017), bien plus que chez le bovin où la concentration en MOs s’élève à 0,2 g.L-1 dans le lait mature (figure 3) (Nakamura et al., 2003 ; Le Gall et al., 2025), 0,25 à 0,3 g.L-1 chez les caprins et 0,02 à 0,04 g.L-1 chez les ovins (Martinez-Ferez et al., 2006). Cependant, le lait mature porcin contient environ 0,7 ou 6 g.L-1 de MOs selon les auteurs, des valeurs plus faibles que chez l’humain mais plus élevées que dans les autres animaux d’élevage (figure 3) (Difilippo et al., 2016 ; Le Bourgot et al., 2024). Aucune donnée de concentration en MOs n’est disponible chez le lapin.
Concernant la structure chimique des MOs, la présence de MOs de types I ou II diffèrent également fortement entre espèces. Chez l’humain, les structures possédant un lacto-N-biose (type I), représentent environ 60 % des structures chimiques des MOs identifiés (Durham et al., 2023), alors que les laits bovins, caprins, ovins ou porcins contiennent majoritairement des structures chimiques possédant un N-acétyllactosamine (type II) (figure 3B) (Albrecht et al., 2014). Les MOs fucosylés, caractéristiques du lait humain, représentent environ 70 % du nombre de structures chimiques identifiés (source MilkOligoDB). À l’inverse, les laits d’animaux d’élevage sont dominés par des structures de MOs acides (sialylés), ils représentent environ 40 % du nombre des structures chimiques des MOs identifiés dans le lait bovin, 54 % des MOs identifiés dans le lait ovin et 46 % des MOs identifiés dans le lait caprin (données extraites de la base MilkOligoDB, figure 3B). Le lait de lapin fait exception à cette règle, puisque le nombre de MOs fucosylés est majoritaire parmi les structures identifiées (70 %) (Combes et al., 2025). Les MOs acides diffèrent également, les laits humains contiennent uniquement le Neu5Ac, tandis que les laits d’animaux d’élevage contiennent aussi le Neu5Gc. Ce dernier représente jusqu’à 47 et 57 % du nombre des structures chimiques des MOs identifiés chez les caprins et ovins, respectivement, contre moins de 2 % chez les porcins (figure 3B). Chez les lapins, à l’instar des humains, les MOs acides sont constitués exclusivement de Neu5Ac (Combes et al., 2025).
Certaines structures sont en revanche spécifiques aux animaux d’élevage. Le lait bovin contient des MOs présentant des motifs de N-acétyllactosamine (Gal(β1- 4)GlcNAc) à la place du lactose, ou encore des dérivés comme LacdiNAc (GalNAc(β1-4)GlcNAc) ou GalNAc(β1-4)Glc (Marino et al., 2011 ; Aldredge et al., 2013). Ces structures n’ont pas été détectées dans le lait humain. Enfin, les laits ovins et bovins contiennent des MOs intégrant de l’acide glucuronique (GlcA) (Jin et al., 2023).
A) Concentration en oligosaccharides du lait. B) Structures chimiques des oligosaccharides décrites dans la base de données MilkOligoDB issue de la littérature de Durham et al. (2023) et de Combes et al. (2025) pour le lapin. Neu5Ac : acide N-acétylneuraminique, Neu5Gc : acide N-glycolylneuraminique.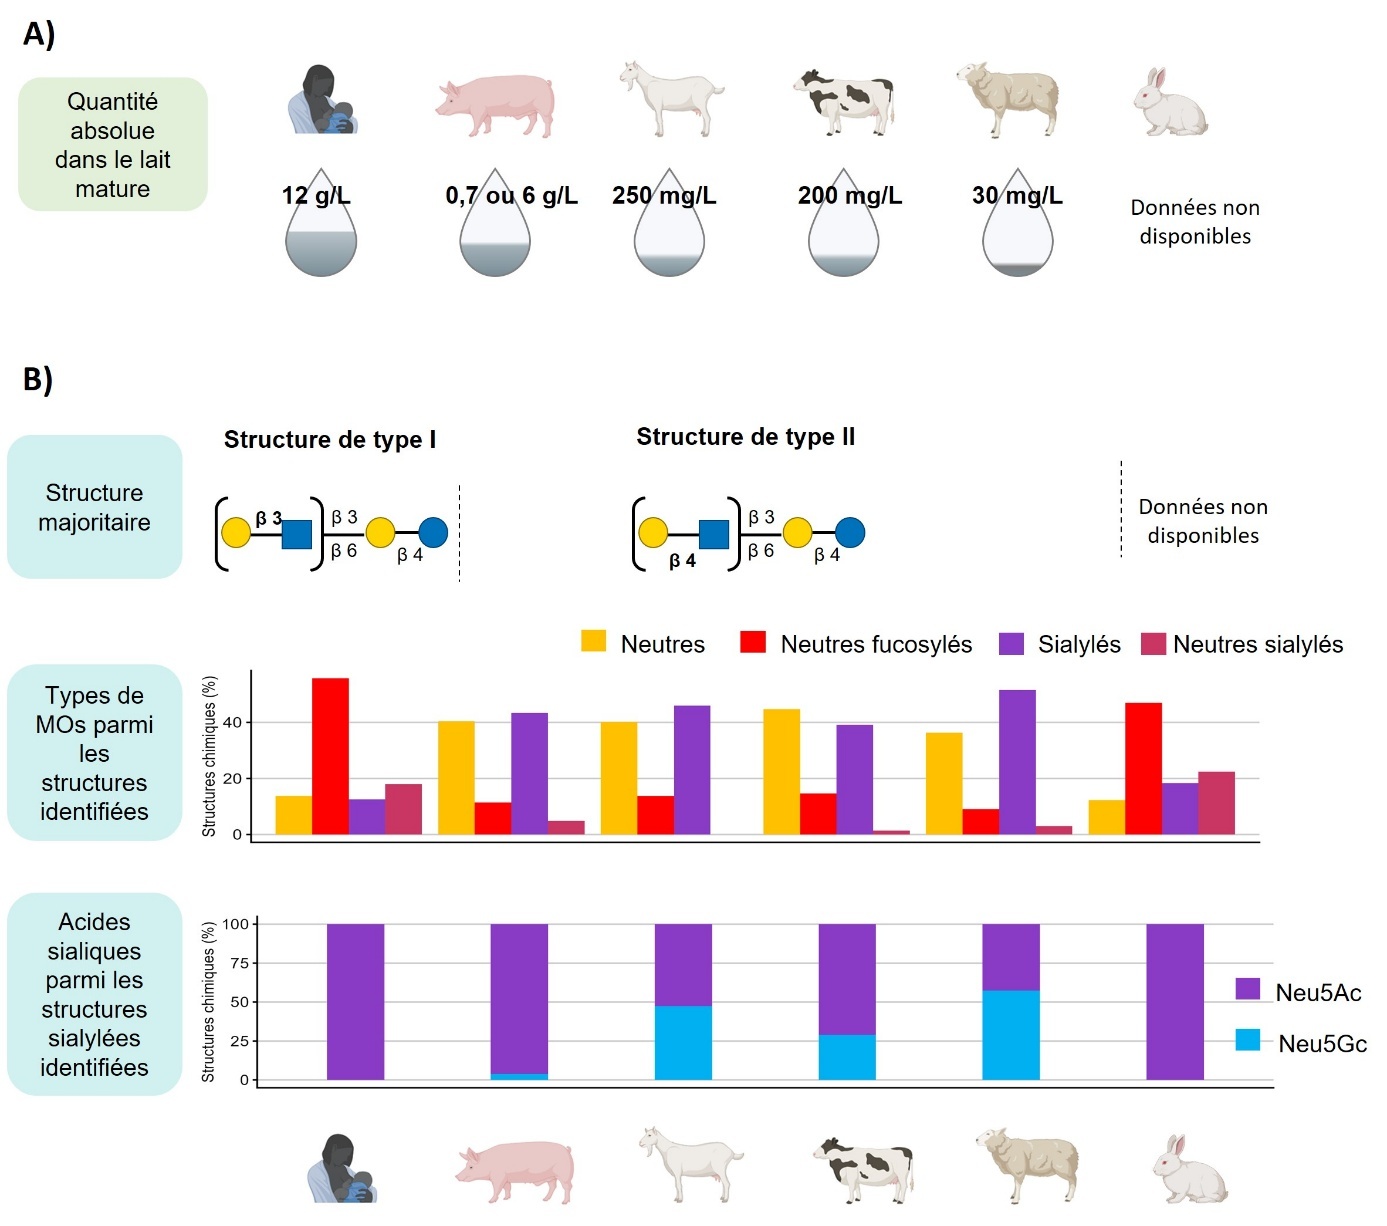
Figure 3 : Oligosaccharides des laits humain, porcin, caprin, bovin, ovin, et cunicole.
Chez l’humain, le 2’-fucosyllactose (2’-FL, encadré 2) est l’un des MOs dominants, avec des concentrations de 2 à 3 g.L-1 dans le lait mature des femmes de phénotype « sécréteur » (voir paragraphe 2.2.a) (Thurl et al., 2017 ; Le Gall et al., 2025) (figure 4). Ce composé est presque absent du lait bovin et caprin (Fong et al., 2011 ; Chatziioannou et al., 2021), mais présent dans le lait ovin (0,2 g.L-1) (Yao et al., 2024). Chez les ruminants, le 3’-sialyllactose (3’-SL, encadré 2) est généralement le MO sialylé majoritaire, présent en concentrations de 50 à 120 mg.L-1 dans le lait bovin, soit environ deux fois moins que chez l’humain (120-190 mg.L-1) (Fong et al., 2011 ; Thurl et al., 2017 ; Le Gall et al., 2025). À l’inverse, le 6’-sialyllactose (6’-SL, encadré 2), MO sialylé dominant dans le lait humain (290-420 mg.L-1), est minoritaire chez les bovins (10-30 mg.L-1) (Fong et al., 2011 ; Le Gall et al., 2025). De même, chez la lapine, le SL est le MO majoritaire mais l’isomère (3’-SL ou 6’-SL) n’a pas encore été caractérisé à ce jour (Combes et al., 2025) (figure 4).
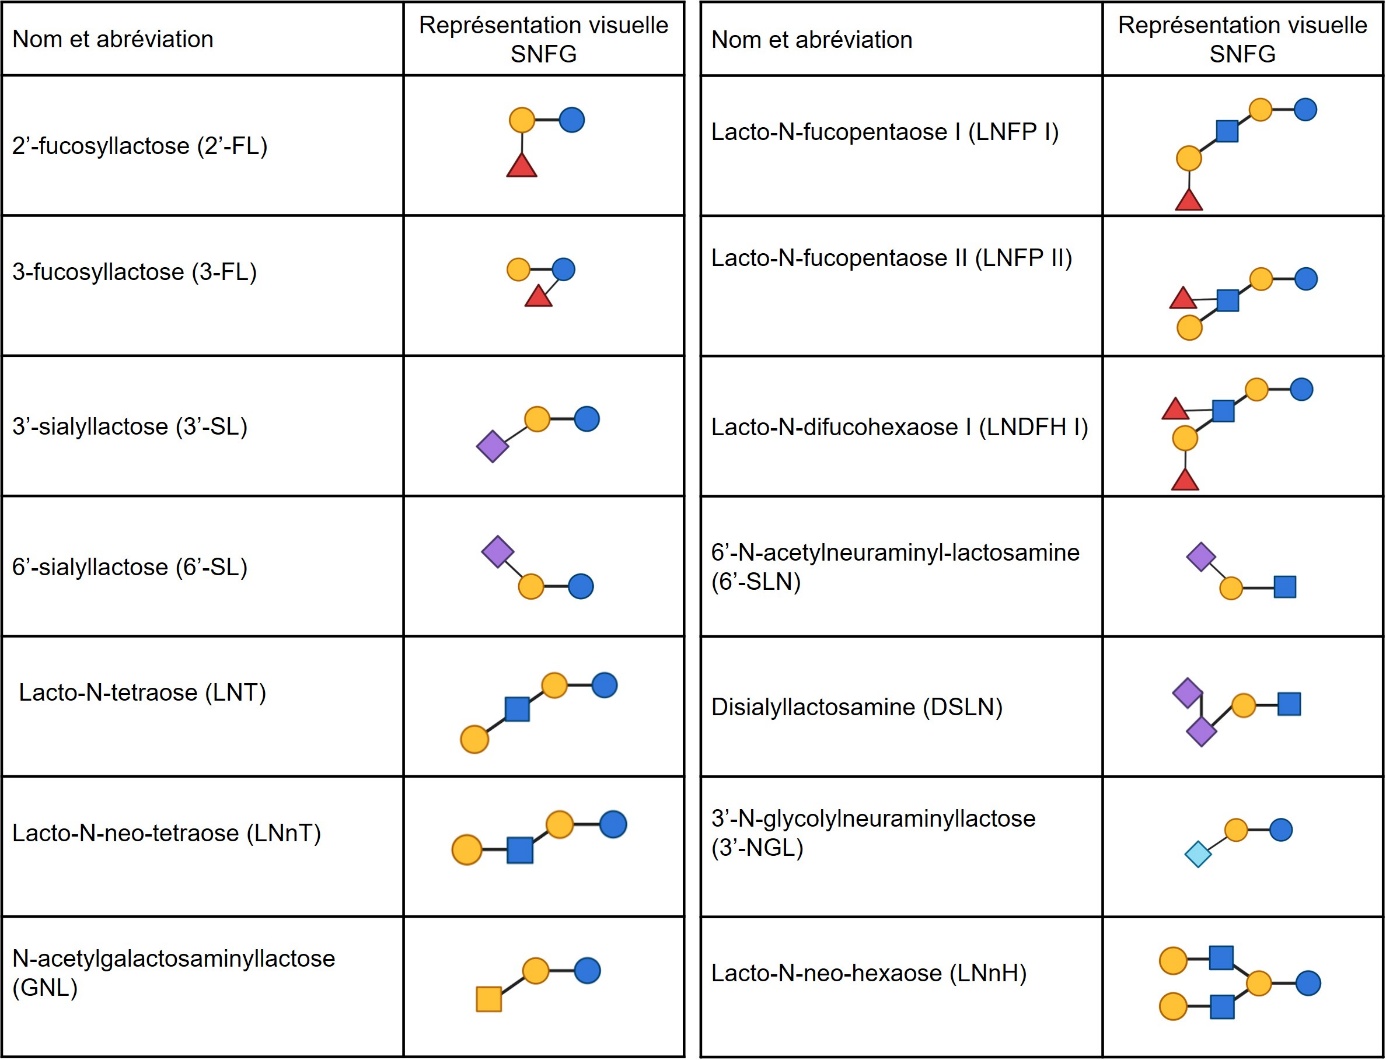
Les symboles des différents oligosaccharides sont explicités dans l’encadré 1.
Lait de femme phénotype sécréteur, vache et truie à 21 jours de lactation d’après Le Gall et al., 2025 ; chèvre à 31 jours de lactation d’après Chatziioannou et al., 2021 ; brebis à 150 jours de lactation d’après Yao et al. (2024) ; lapine à 17 jours de lactation d’après Combes et al. (2025). Voir encadré 2 pour la définition des acronymes des MOs. En rouge les MOs fucosylés, en bleu les MOs neutres, en violet les MOs sialylés contenant un acide Neu5Ac et en bleu ciel un MO contenant un Neu5Gc. Pour le lapin les isomères du SL et LNFP n’ont pas été identifiés.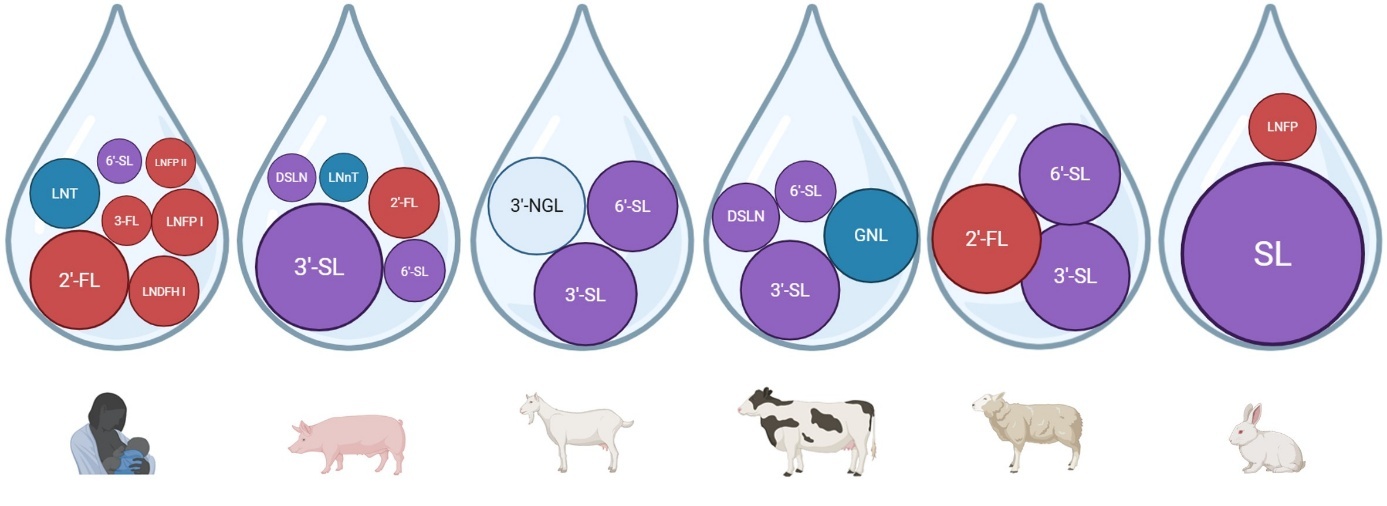
Figure 4 : Illustration des profils d’abondance relative des MOs majoritaires dans les laits matures chez la femme, la truie, la chèvre, la vache, la brebis et la lapine.
Figure créée avec Biorender.
Selon les études le profil du lait de truie est dominé par les MOs acides ou MOs neutres non fucosylés (Cheng et al., 2016 ; Mudd et al., 2016 ; Salcedo et al., 2016 ; Le Gall et al., 2025). Contrairement au lait humain et bovin, la composition en MO du lait porcin a fait l’objet de moins d’études que nous avons synthétisées dans le tableau 1. Les données présentées ici chez le porc, illustrent les divergences entre études. D’une manière générale, quelle que soit l’espèce considérée, ces divergences résultent de la variabilité biologique mais également des méthodes analytiques employées pour identifier et quantifier les MOs et dont la sensibilité et la spécificité varient (tableau 1).
Auteur, date | Type de lait | Nombre de MOs (quantité absolue) | Abondance relative (%) | Nombre de MOs | MO majoritaire (quantité absolue) | Nombre de MOs avec Neu5Gc | Nombre individus | Méthode de détection | |||||||
N | F | S | N | F | S | ||||||||||
Trevisi et al. (2020) | Colostrum | 21 | 50 | 2 | 48 | 8 | 8 | 7 | SL | 0 | 83 truies | Spectrométrie de masse par désorption laser assistée par matrice avec temps de vol | |||
Tao et al. (2010) | Jours 4-7 de lactation | 29 | ND | ND | 60 | 8 | 6 | 18 | SL | 1 | 3 truies | Chromatographie liquide et spectrométrie de masse | |||
Difilippo et al. (2016) | Une semaine de lactation | 34 (6 g.L-1) | 58 | ND | 49 | 13 | 6 | 15 | 3'-SL (2-3 g.L-1) | 0 | 2 truies | Électrophorèse capillaire détection par fluorescence, spectrométrie de masse et chromatographie liquide | |||
Mudd et al. (2016) | Colostrum | 60 | 69 | 2 | 29 | 31 | 8 | 21 | En moyenne sur les 3 stades de lactations LNnH (50 mg.L-1) 3′-SL (~30 mg/L) | 0 | 7 truies | Chromatographie liquide nanométrique sur puce couplée à un spectromètre de masse à temps de vol et chromatographie échangeuse d’ions | |||
Jour 7 de lactation | 76 | 4 | 20 | ||||||||||||
Jour 18 de lactation | 81 | 3 | 16 | ||||||||||||
Salcedo et al. (2016) | Jour 7 de lactation | 33 | 51 | 18 | 31 | 16 | 4 | 12 | 3'-SL | 0 | 3 truies | Chromatographie liquide nanométrique sur puce avec spectrométrie de masse à quadripôle et temps de vol | |||
Wei et al. (2018) | Colostrum | 54 | 22 | 1 | 77 | 19 | 2 | 33 | 3'-SL | 1 | 7 cochettes 10 truies | Chromatographie liquide avec spectrométrie de masse en tandem par ionisation électro spray | |||
Jour 3 de lactation | 53 | 18 | 7 | 74 | 18 | 2 | 32 | ||||||||
Jour 15 de lactation | 47 | 33 | 9 | 56 | 16 | 2 | 29 | ||||||||
Cheng et al. (2016) | Inconnu | 41 | 67 | 3 | 30 | 11 | 9 | 24 | Trisaccharide neutre SL | 1 | Inconnu | Chromatographie par interaction hydrophile couplée à spectrométrie de masse en tandem à quadripôle et temps de vol | |||
Le Bourgot et al. (2024) | Colostrum | 20 (3,5 g.L-1) | 20 | 2 | 78 | 11 | 3 | 6 | 3’SL (2,1 g.L-1) | 0 | 6 truies | Chromatographie liquide ultra-haute performance par interaction hydrophile, avec détection par fluorescence et spectrométrie de masse | |||
Jour 21 de lactation | 17 (0,6 g.L-1) | 26 | 1 | 73 | 11 | 3 | 3 | 3’SL (0,35 g.L-1) | |||||||
Le Gall et al. (2025) | Colostrum | 19 (2,69 g.L-1) | 29 | 5 | 66 | 9 | 3 | 7 | 3’SL (1,4 g.L-1) | 0 | 24 truies | Chromatographie liquide ultra-haute performance par interaction hydrophile, avec détection par fluorescence et spectrométrie de masse | |||
Jour 21 de lactation | 18 (0,85 g.L-1) | 30 | 16 | 53 | 8 | 3 | 7 | 3’SL (0,29 g.L-1) | |||||||
La variabilité entre les études pourrait s’expliquer par les différences de race ou de type de lait prélevé mais également par les méthodes de détection.
MOs : oligosaccharides du lait, N : neutre, F : fucosylé, S : sialylé, Colostrum : première sécrétion de la glande mammaire. ND : non déterminé.
2.2. Variabilité intra-espèce
a. Génétique
Chez l’humain, la composition en MOs est fortement influencée par la génétique maternelle, en particulier par les gènes codant pour certaines fucosyltransférases. Ces relations, bien établies chez l’humain, ne sont en revanche que très peu ou pas documentées chez les espèces d’élevage. Seules deux études menées chez les caprins suggèrent un déterminisme génétique (Chatziioannou et al., 2021 ; Gonzalez-Prendes et al., 2024). Cette section se concentre donc sur les connaissances obtenues chez la femme, où la composition en MOs s’explique notamment par les variations de présence ou d’activité des fucosyltransférases FUT2 et FUT3, codées respectivement par les gènes Sécréteur (Se : gène FUT2) et Lewis (Le : gène FUT3) (Kobata, 2017).
L’enzyme α1-2-fucosyltransférase codée par le gène Sécréteur FUT2 catalyse l’ajout d’un fucose en liaison α1-2 sur le galactose d’une molécule de lacto-N-biose (Gal(β1-3)GlcNAc), formant ainsi la structure Fuc(α1-2)Gal(β1-3)GlcNAc (figure 5). Ce motif structurel, nommé motif H, est présent notamment dans le lacto-N-fucopentaose I (LNFP I, encadré 2). L’enzyme α1-3/4 fucosyltransférase, codée par le gène dit de Lewis (FUT3), quant à elle, permet le transfert d’un fucose en α1-4 sur le GlcNAc d’une molécule de lacto-N-biose, conduisant à la formation du motif ou antigène Lewis a (Lea (Gal(β1-3)[Fuc(α1-4)]GlcNAc)), présent par exemple dans le lacto-N-fucopentaose II (LNFP II, encadré 2). Lorsque cette action s’ajoute à celle de FUT2, une double fucosylation génère le motif Lewis b (Leb (Fuc(α1-2)Gal(β1-3)[Fuc(α1-4)]GlcNAc)), observé dans le lacto-N-difucohexaose I (LNDFH I, encadré 2).
Il existe un allèle des gènes Sécréteur (Se > se) et Lewis (Le > le) qui est dominant. La présence d’une seule copie de ces allèles est suffisante pour exprimer le phénotype associé. Les individus homozygotes (Se/Se) ou hétérozygotes (Se/se) sont appelés Sécréteur (Se+) car l’enzyme FUT2 est fonctionnelle. Les individus homozygotes (Le/Le) ou hétérozygotes (Le/le) sont dits Lewis positifs (Le+) car l’enzyme FUT3 est fonctionnelle. Les interactions alléliques (épistasie) entre ces deux gènes, Sécréteur (FUT2) et Lewis (FUT3), entraînent quatre phénotypes, également appelés lactotypes. Les profils en MOs montrent des différences importantes selon le lactotype (figure 5) (Thurl et al., 1997) : i) groupe 1 : Lewis b Sécréteur (Le+ (a-, b+), Se+), individus possédant au moins un allèle dominant Le et au moins un allèle dominant Se, le lait de ces individus contient toutes les structures ; ii) groupe 2 : Lewisa non Sécréteur (Le+ (a+, b-), Se-), individus possédant au moins un allèle dominant Le, mais homozygotes pour l’allèle récessif se, donc incapables de synthétiser des MOs α1-2-fucosylés ; iii) groupe 3 : Lewis négatifs sécréteurs (Le- (a-, b-), Se+), individus dépourvus d’allèle Le fonctionnel, mais exprimant le gène Se, ils possèdent des MOs avec des résidus de fucose liés en α1-2 ; iv) groupe 4 Lewis négatifs non Sécréteur (Le (a-, b-), Se-), homozygotes pour les allèles récessifs le et se, incapables de produire des MOs α1-4-fucosylés.
Ces gènes codent pour les fucosyltransférases FUT2 et FUT3 lorsqu’au moins un allèle dominant est présent. L’action de FUT2 permet l’addition de fucose selon une liaison α1-2 au galactose d’un motif lacto-N-biose. FUT3 catalyse l’addition de fucose selon une liaison α1-4 au N-acétylglucosamine d’un motif lacto-N-biose. Se/Le : allèle dominant ; se/le : allèle récessif ; Gal : galactose ; GlcNAc : N-acétylglucosamine ; Fuc : Fucose. Figure adaptée de Bode (2012).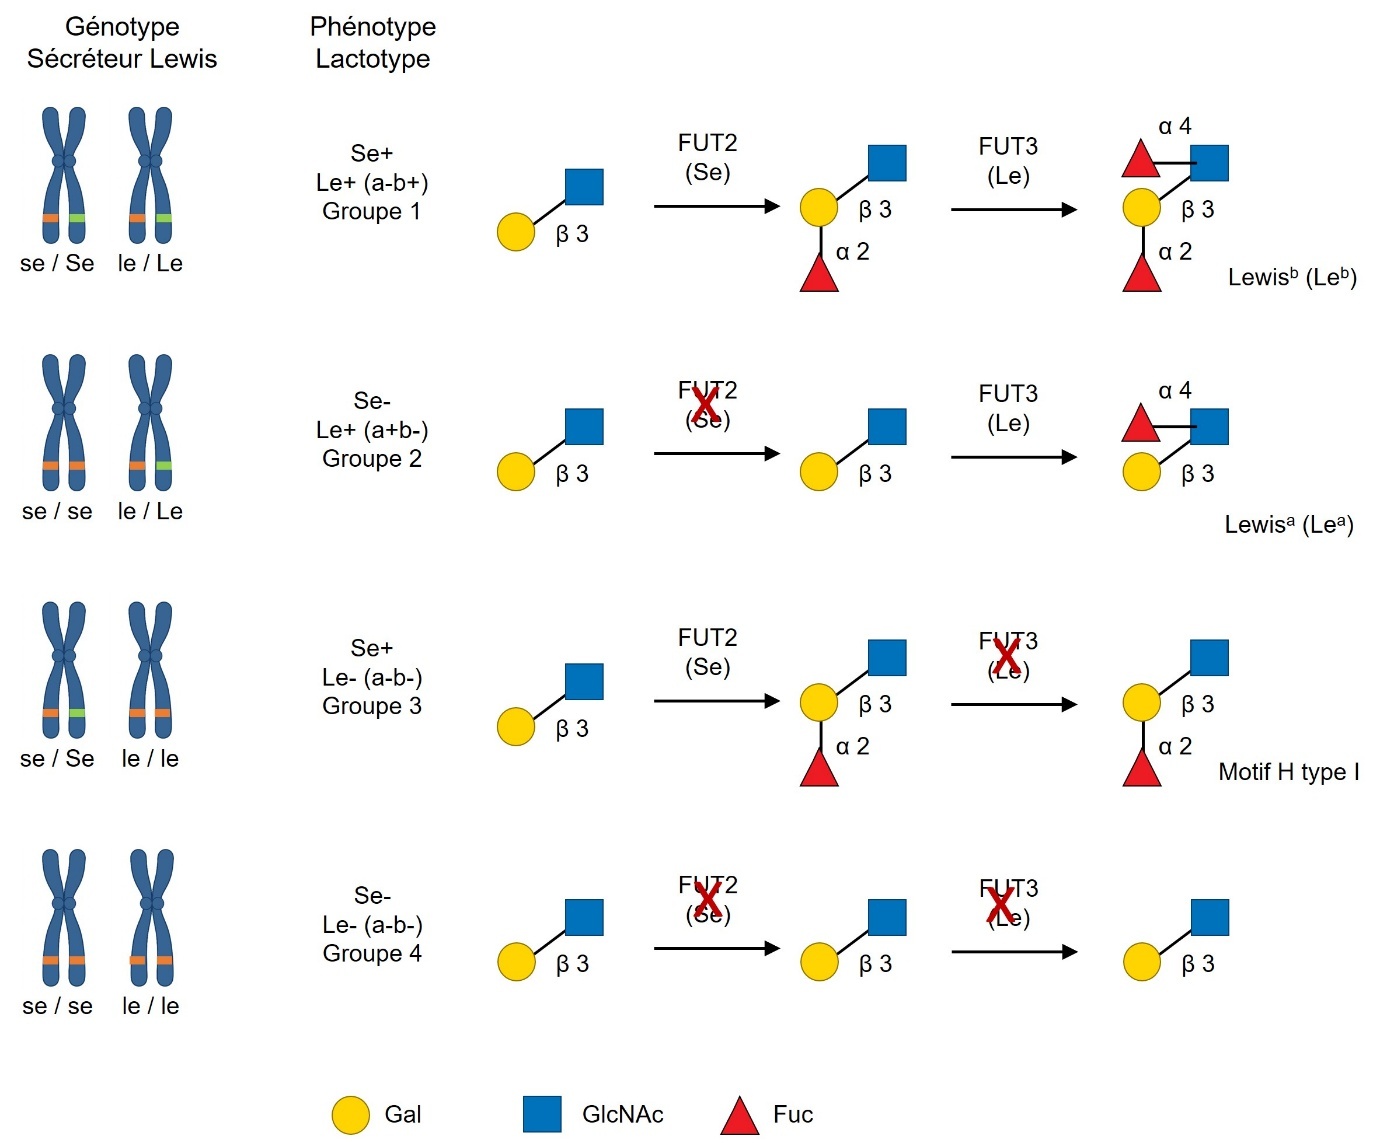
Figure 5 : Lactotypes basés sur l’expression du gène Sécréteur (Se ou FUT2) et du gène Lewis (Le ou FUT3).
Les MOs de type I sont ainsi les précurseurs des motifs ou antigènes Lea, Leb et H. D’autres motifs antigéniques sont observés dans la structure chimique des oligosaccharides de type II selon le même mécanisme et les enzymes FUT1 et FUT3. Ainsi l’action de FUT3 donne naissance au motif Lewis x (Lex Gal(β1-4)[Fucα1-3]GlcNAc) et l’action combinée de FUT1 et FUT3 génère le motif Lewis y (Ley Fuc(α1-2)Gal(β1-4)[Fuc(α1-3)]GlcNAc) (Smith & Cummings, 2017 ; Garádi et al., 2025) (figure 6).
Ces gènes codent pour les fucosyltransférases FUT1 et FUT3 lorsqu’au moins un allèle dominant est présent. L’action de FUT1 permet l’addition de fucose selon une liaison α1-2 au galactose d’un motif N-acétyllactosamine. FUT3 catalyse l’addition de fucose selon une liaison α1-3 au N-acétylglucosamine d’un motif N-acétyllactosamine. Gal : galactose ; GlcNAc : N-acétylglucosamine ; Fuc : fucose.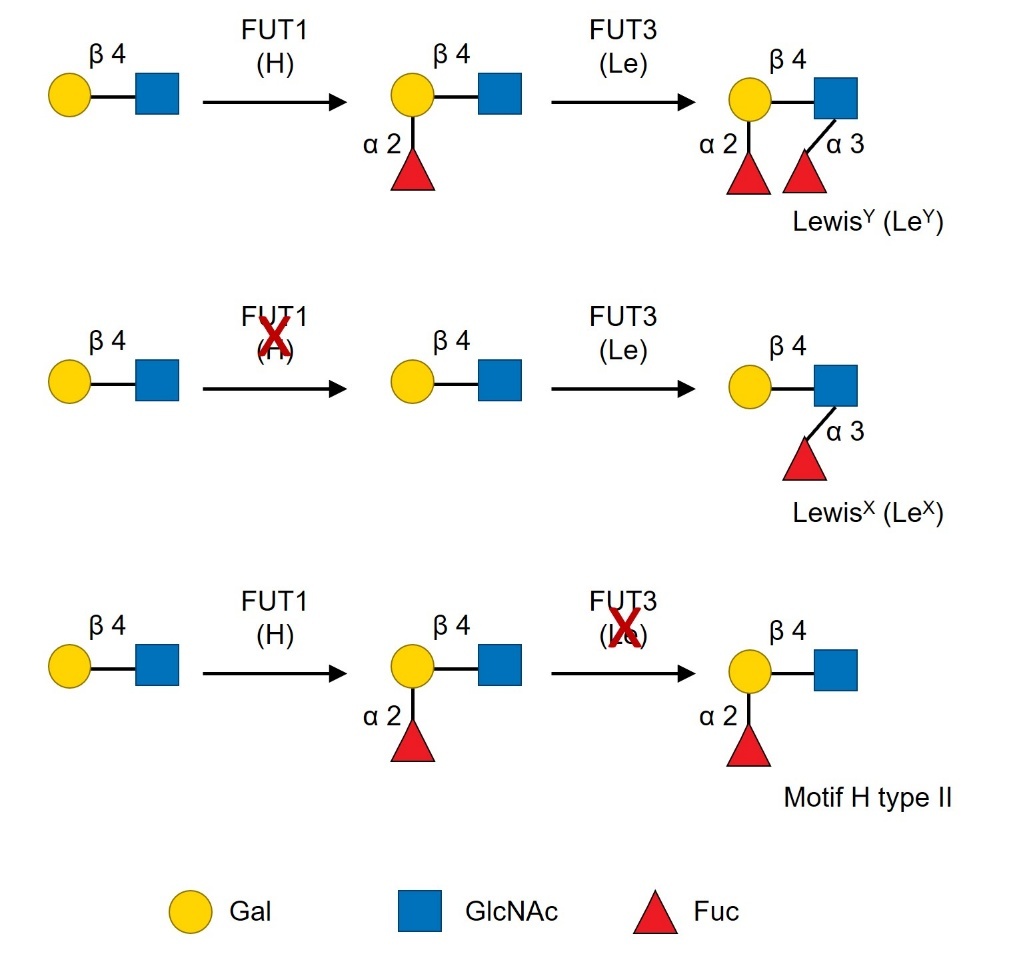
Figure 6 : Motifs antigéniques sur la structure chimique des oligosaccharides du lait basés sur l’expression des gènes H (FUT1) et Lewis (Le ou FUT3).
Ainsi, chez l’humain, la génétique maternelle influence de manière déterminante les profils en MOs, via l’expression différentielle de fucosyltransférases. Toutefois, l’impact de la génétique sur la composition en MOs reste largement méconnu chez les mammifères d’élevage.
b. Race des animaux
Les profils de composition en MOs présentent une variabilité notable, non seulement entre espèces, mais également entre races au sein d’une même espèce. Chez le porc, la diversité des MOs dans le colostrum (première sécrétion de la glande mammaire) est plus faible chez les truies Landrace que chez celles des races Duroc ou Large White (Trevisi et al., 2020), bien que ces différences tendent à s’atténuer dans le lait mature, où une étude ne rapporte plus de variations significatives (Cheng et al., 2016). Chez les bovins, le lait des vaches Jersiaises contient généralement des concentrations plus élevées en MOs acides et fucosylés que celui des Holstein (McJarrow & van Amelsfort-Schoonbeek, 2004 ; Robinson et al., 2019). Enfin, chez la chèvre, les races Guanzhong et Garnica présentent des teneurs supérieures en acides sialylés, notamment en 3’-SL et 6’-SL, comparativement aux races Saanen ou Maltaise (Claps et al., 2014 ; Lu et al., 2020). Ces observations soulignent l’existence d’une variabilité intra-espèce importante dans la composition en MOs, dont les mécanismes sous-jacents, qu’ils soient d’ordre génétique, métabolique ou environnemental, demeurent encore mal élucidés.
2.3. Variabilité intra-individu
a. Stade de lactation
La concentration en MOs est maximale dans le colostrum, puis diminue fortement au cours de la lactation. Ce phénomène, observé de manière unanime chez les mammifères, reflète la fonction spécifique du colostrum, particulièrement riche en composés bioactifs destinés à soutenir le développement intestinal et immunitaire du nouveau-né (Nakamura et al., 2003 ; Martinez-Ferez et al., 2006 ; Urashima et al., 2009 ; Difilippo et al., 2016).
Chez l’humain, le colostrum contient en moyenne 22 à 24 g.L-1 de MOs contre 12 à 13 g.L-1 dans le lait mature (Urashima et al., 2009). Chez les espèces d’élevage, les concentrations sont plus faibles, mais la même tendance est observée. Chez les bovins, les MOs atteignent environ 1 g.L-1 dans le colostrum contre 200 mg.L-1 dans le lait mature (Nakamura et al., 2003). Chez les caprins, Martinez-Ferez et al. (2006) ont rapporté 2,4 g.L-1 de MOs dans le colostrum contre 250 à 300 mg.L-1 dans le lait mature. Chez la truie, seules deux études rapportent des concentrations de MOs avec des valeurs de 12 g.L-1 dans le colostrum et 6 g.L-1 dans le lait mature pour Difilippo et al., (2016), tandis que Le Bourgot et al., (2024) rapportent des concentrations de 4 g.L-1 et 0,7 g.L-1 dans le colostrum et le lait mature respectivement. Au-delà de cette diminution quantitative globale, des changements qualitatifs apparaissent au cours de la lactation. Dans la majorité des espèces d’élevage, on observe une baisse progressive des proportions MOs sialylés, souvent associée à une augmentation relative des MOs fucosylés.
Chez les bovins, les concentrations en 3’-SL passent d’environ 0,9 g.L-1 dans le colostrum à 0,09 g.L-1 seulement trois jours après le vêlage (Nakamura et al., 2003 ; Tao et al., 2010). De même, les concentrations en 3’-SL, 6’-SL et 6’-N-acétylneuraminyl-lactosamine (6’-SLN, encadré 2) diminuent nettement entre la première et la cinquième traite (McJarrow & van Amelsfort-Schoonbeek, 2004), parallèlement à la baisse d’abondance relative des MOs contenant le monosaccharide Neu5Gc (Tao et al., 2010). Chez la truie, l’abondance relative des MOs acides (sialylés) est d’environ 78 % au moment de la mise bas, et 56 % après deux à trois semaines de lactation (Wei et al., 2018). Cette évolution s’accompagne d’une augmentation de la proportion de MOs fucosylés. Chez la chèvre, la concentration de la majorité des MOs diminue au cours de la lactation, à l’exception du 3’-N-glycolylneuraminyllactose (3’-NGL, encadré 2) (Chatziioannou et al., 2021). Par ailleurs, la proportion relative des MOs contenant le monosaccharide Neu5Gc ou du fucose tend à augmenter (Martín-Ortiz et al., 2017). Enfin, chez la lapine, l’abondance relative de SL, sans distinction de l’isomère, diminue 2,5 fois entre le 7e jour et la fin de la lactation (25 jours). À l’inverse, l’abondance relative des MOs neutres et neutres fucosylés augmente en fin de lactation, devenant les types prédominants (Combes et al., 2025).
b. Rang de parité
Les données disponibles suggèrent que le rang de parité, c’est-à-dire le nombre de mises bas successives d’une femelle, modulerait la composition en MOs chez plusieurs espèces d’élevage, avec des effets toutefois variables selon les molécules et les études. Globalement, certaines espèces, comme la vache (Robinson et al., 2019), la chèvre (Gonzalez-Prendes et al., 2024) et la truie (Wei et al., 2018), montrent des différences de concentrations ou de diversité, notamment pour les MOs sialylés, qui tendent à être moins abondants chez les primipares. Cependant, les résultats restent hétérogènes selon les travaux, et l’effet de la parité n’est pas systématique (Trevisi et al., 2020).
c. Alimentation
À ce jour, les études portant sur l’effet de l’alimentation sur la composition en MOs concernent majoritairement l’humain. Plusieurs travaux ont montré que l’apport en macronutriments, protéines, lipides et glucides notamment, influence la concentration et la diversité des MOs dans le lait maternel (Azad et al., 2018 ; Seferovic et al., 2020). L’augmentation de la consommation de fibres totales est généralement associée à une concentration plus élevée en MOs, comme observé dans une cohorte de mères au Mexique (Urrutia-Baca et al., 2024), tandis que les fibres insolubles auraient un effet inverse (Selma-Royo et al., 2022). Par ailleurs, certains micronutriments, tels que les vitamines et les ions métalliques, modifient également la composition qualitative du lait en MOs (Qiao et al., 2013 ; Biddulph et al., 2023 ; Mokhtari et al., 2024).
Chez les espèces d’élevage, les études évaluant l’effet de l’alimentation maternelle sur la composition en MOs restent rares. Pourtant, ce paramètre pourrait représenter un levier majeur pour moduler la qualité du lait, notamment dans une optique de nutrition néonatale. En effet, la ration alimentaire des femelles reproductrices varie considérablement selon le stade physiologique, le niveau de production et les pratiques d’élevage. Une étude chez la brebis a montré que la supplémentation en levure vivante affectait la composition en MOs, augmentant significativement le taux de MOs avec le monosaccharide Neu5Gc dans le colostrum jusqu’à cinq heures après l’agnelage (Dunière et al., 2022). On peut donc supposer que, comme chez l’humain, la nature et la quantité des nutriments ingérés (fibres, acides aminés, minéraux, acides gras) pourraient influencer la biosynthèse et la sécrétion des MOs dans le lait chez les animaux d’élevage. L’étude de ces relations chez les animaux d’élevage constituerait ainsi une perspective particulièrement intéressante, car elle ouvrirait la voie à des stratégies nutritionnelles visant à enrichir le lait en MOs bénéfiques pour la santé et le développement intestinal des jeunes animaux.
3. Fonctions des oligosaccharides du lait
Les MOs résistent à l’action des enzymes digestives et parviennent intacts jusqu’à la partie distale de l’intestin, où ils exercent leurs effets sur la barrière intestinale. Cette barrière repose sur une organisation en plusieurs niveaux complémentaires : i) une composante physique, qui régule l’adhésion bactérienne et le passage des composés de la lumière intestinale vers les tissus, ii) une composante chimique à l’origine de substances antimicrobiennes et iii) une composante immunitaire, chargée de distinguer les pathogènes des microorganismes commensaux. Elle associe, de la lumière vers l’intérieur du tube intestinal, le microbiote intestinal, l’épithélium intestinal recouvert d’une couche de mucus partiellement colonisée par le microbiote et la lamina propria, constituée de nombreuses cellules impliquées dans la réponse immunitaire (Viggiano et al., 2015).
Seule une petite fraction des MOs, entre 1 et 4 %, peuvent traverser la paroi intestinale et être retrouvée dans le sang ou l’urine, suggérant qu’ils pourraient aussi avoir des effets systémiques (Goehring et al., 2014 ; Dotz et al., 2015). Ainsi, les MOs échappent largement à l’absorption par l’hôte et atteignent le site clé de leur action, la partie distale de l’intestin, où ils peuvent agir sur les microorganismes et sur les cellules intestinales.
3.1. Action prébiotique
Les MOs constituent les premiers prébiotiques naturels auxquels le nouveau-né est exposé. Ils servent de substrats à certaines bactéries intestinales bénéfiques, stimulant leur croissance et contribuant ainsi à l’installation d’un microbiote favorable à la santé digestive (Gibson et al., 2017). L’action prébiotique des MOs a été particulièrement décrite pour Bifidobacterium, un genre dominant dans le microbiote des nourrissons allaités (Milani et al., 2017) et Bacteroides plus fréquent chez les animaux d’élevage (figure 7A).
Les Bifidobacterium possèdent des enzymes glycosidases et des systèmes de transport spécifiques leur permettant de dégrader une large variété de structures de MOs, leur conférant un avantage compétitif sur d’autres espèces moins adaptées (Garrido et al., 2013). Les Bacteroides, sont également capables d’utiliser certaines structures de MOs (Marcobal et al., 2011 ; Yu et al., 2013 ; Kijner et al., 2024 ; Rumeau et al., 2025). Les Bacteroides disposent de systèmes enzymatiques capables de dégrader les mucines intestinales, ce qui leur permet d’occuper efficacement la niche du mucus et de limiter l’implantation de pathogènes concurrents. Plusieurs espèces, comme Bacteroides thetaiotaomicron, contribuent directement au maintien de l’intégrité de la barrière intestinale, elles stimulent la réparation épithéliale, renforcent les jonctions serrées, favorisent la production de mucines et de peptides antimicrobiens, et modulent la réponse immunitaire en orientant l’hôte vers des profils anti-inflammatoires. La dégradation des MOs par ces bactéries libère des sucres simples et des métabolites disponibles pour d’autres espèces (figure 7A). Ce phénomène de coopération métabolique (ou syntrophie) favorise la diversité microbienne et contribue au maintien d’un écosystème intestinal stable (Thongaram et al., 2017 ; Chia et al., 2021).
Ainsi, les MOs orientent précocement la composition du microbiote intestinal, favorisant l’implantation de bactéries bénéfiques. Chez les jeunes animaux, cette modulation du microbiote pourrait participer à la maturation de la fonction intestinale et à la réduction des troubles digestifs observés lors du sevrage.
A) Les MOs peuvent être dégradés par certaines bactéries commensales. B) Les MOs empêchent l’adhésion des pathogènes, les empêchant de coloniser l’épithélium. La croissance des bactéries commensales favorisée par les MOs limite également la colonisation par les pathogènes. C) Les MOs renforcent la barrière épithéliale en favorisant la production de mucus, l’expression des protéines de jonctions et la différenciation des cellules épithéliales. D) Les MOs régulent l’immunité intestinale de façon directe, en se fixant sur certaines cellules immunitaires, ou indirecte, par le biais des métabolites produits à l'issue de la fermentation des MOs par les bactéries. CD : Cellules dendritiques ; LB : Lymphocytes B ; LT : Lymphocytes T. Figure créée sur Biorender, adaptée de Sun et al. (2025).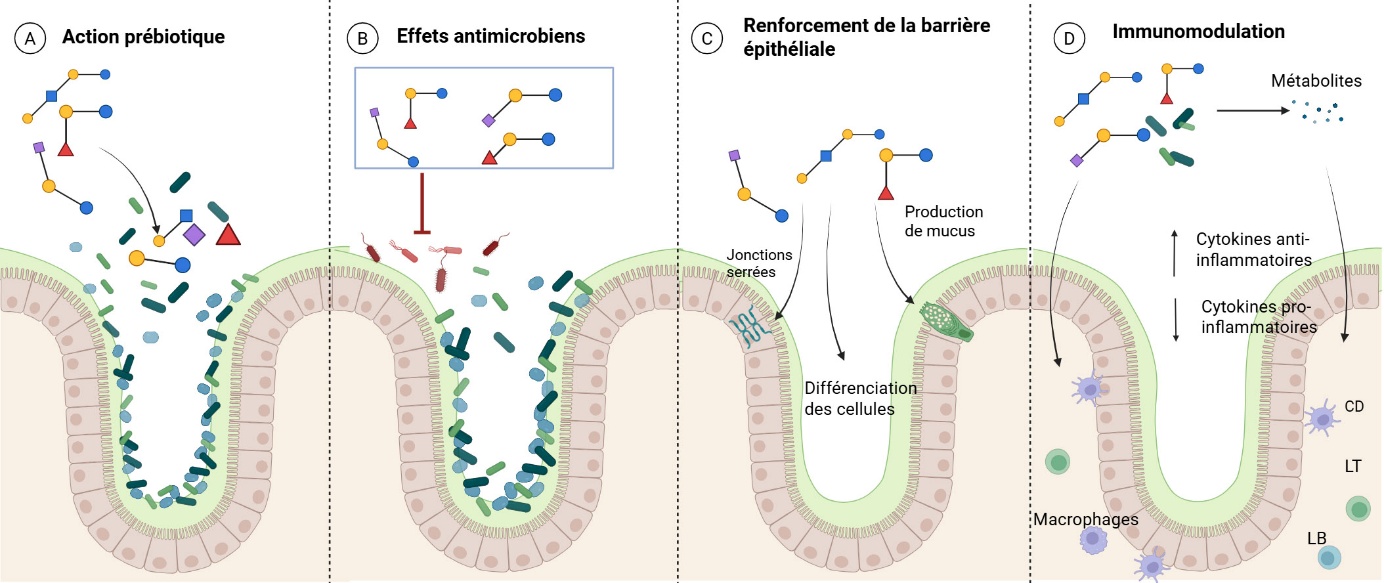
Figure 7 : Rôle des oligosaccharides du lait sur la santé digestive.
3.2. Action antimicrobienne
Les MOs exercent une action directe en empêchant l’adhésion des microorganismes pathogènes aux cellules intestinales (figure 7B). En effet, de nombreux pathogènes se fixent à la muqueuse intestinale grâce à des interactions entre leurs lectines (glycoprotéines) de surface et des glucides spécifiques présents sur les cellules épithéliales (Karlsson, 1989). Les MOs possèdent des structures très proches de ces glucides et agissent ainsi comme des leurres, ils se lient aux pathogènes et bloquent leur attachement à l’hôte. Ce mécanisme a été mis en évidence pour plusieurs bactéries entériques pathogènes. Le 2’-FL inhibe, par exemple, la liaison de Campylobacter jejuni ou Escherichia coli à l’épithélium intestinal, réduisant la colonisation et les diarrhées associées (Ruiz-Palacios et al., 2003 ; Wang et al., 2020). Les MOs ont aussi une activité antivirale. Les structures contenant de l’acide sialique peuvent se lier au virus influenza (Yu et al., 2012). Les MOs fucosylés tels que le 2’-FL et le 3-fucosyllactose (3-FL, encadré 2) interférent avec les norovirus en mimant les antigènes du groupe sanguin auxquels ces virus se fixent, empêchant ces derniers de se fixer à la mucine gastrique porcine (Weichert et al., 2016), tandis que d’autres structures inhibent la liaison des rotavirus, responsables de diarrhées néonatales (Hester et al., 2013). Les MOs peuvent également inhiber l’adhésion des pathogènes à la muqueuse épithéliale de façon indirecte, en se fixant sur les lectines épithéliales à la place du pathogène (Moore et al., 2021).
Ces observations montrent que l’activité antimicrobienne des MOs dépend étroitement de leur structure (acide, neutre, fucosylée). Une différence dans la position d’un groupement peut modifier leur affinité pour un pathogène donné, expliquant la spécificité d’action de chaque MO. Dans l’ensemble, les MOs contribuent donc à la protection antimicrobienne en agissant à la fois sur la composition du microbiote et comme barrière moléculaire contre les pathogènes entériques bactériens et viraux.
3.3. Renforcement de la barrière épithéliale
Chez le jeune animal, la barrière épithéliale n’est pas encore complètement développée à la naissance. Or, cette barrière joue un rôle essentiel, elle empêche les pathogènes et les toxines de traverser la paroi digestive tout en laissant passer les nutriments et les molécules bioactives nécessaires à la croissance. Les MOs participent activement à la mise en place et au bon fonctionnement de cette barrière (figure 7C).
Les MOs contribuent à la formation d’un épithélium bien organisé et cohérent, capable de se renouveler et de contenir les agressions extérieures (figure 7C). Chez l’humain, certains MOs comme le 2’-FL ou le 6’-SL, pourraient limiter les lésions de la muqueuse et renforcer la cohésion entre les cellules intestinales (Holscher et al., 2017 ; Wu et al., 2019). On peut donc supposer qu’ils jouent un rôle similaire chez les jeunes animaux d’élevage, notamment en amont du sevrage, une période où l’intestin est particulièrement fragile. Les MOs stimulent aussi la production de mucus, fine couche qui tapisse l’intérieur de l’intestin (Wu et al., 2019 ; Cheng et al., 2020 ; Paone et al., 2024). Ce mucus empêche les bactéries pathogènes de se fixer sur les cellules. Les MOs peuvent aider à limiter l’inflammation de l’intestin, souvent déclenchée lors des infections ou des changements alimentaires. Certains d’entre eux réduisent la production de molécules inflammatoires (Lane et al., 2013 ; He et al., 2016 ; Sodhi et al., 2021). Ces effets ont bien été démontrés chez l’humain et la souris, mais laissent envisager des applications concrètes en élevage, par exemple pour améliorer la santé digestive sans recours aux antibiotiques. Tous les MOs n’ont pas le même effet, leur structure chimique influence fortement leur action. Certains agissent plutôt sur la cohésion des cellules intestinales, d’autres sur la production de mucus ou la modulation de l’immunité. Cette diversité ouvre la voie à la formulation d’aliments enrichis en MOs spécifiques selon les besoins des espèces ou des stades physiologiques.
3.4. Immunomodulation des cellules immunitaires et épithéliales
Les MOs jouent également un rôle dans la construction de la barrière intestinale en influençant le fonctionnement du système immunitaire (figure 7D). Leur action se fait à la fois directement sur les cellules épithéliales et immunitaires et indirectement via le microbiote intestinal.
a. Action directe des oligosaccharides du lait sur les cellules immunitaires
Certains MOs peuvent interagir directement avec des récepteurs présents à la surface des cellules du système immunitaire, comme les macrophages, les cellules dendritiques ou les lymphocytes (Triantis et al., 2018). Ces récepteurs reconnaissent habituellement des sucres présents à la surface des microorganismes, ce qui déclenche une réponse immunitaire. En se liant à ces récepteurs, les MOs peuvent moduler cette réponse, en atténuant l’inflammation ou favorisant une réponse plus équilibrée, stimulant notamment la balance des cellules pro et anti inflammatoires. Ainsi, les MOs agissent différemment selon leur structure, qui définit leur liaison avec les récepteurs (Singh et al., 2022).
Les MOs auraient ainsi des propriétés anti-inflammatoires, réduisant l’expression de cytokines pro-inflammatoires tout en stimulant des réponses immunitaires régulatrices contribuant à un système immunitaire moins réactif face aux antigènes alimentaires ou bactériens (figure 7D). Plusieurs études in vitro ont ainsi montré que les MOs peuvent limiter la production de cytokines pro-inflammatoires comme TNF-α, IL-1β ou IL-6, tout en favorisant la production de cytokines anti-inflammatoires comme IL-10 (Xiao et al., 2019 ; Zuurveld et al., 2023). Ces effets ont également été démontrés in vivo chez l’homme, où la supplémentation de formules infantiles avec du 2’-FL entraîne une concentration en cytokines pro-inflammatoires plasmatiques inférieures (Goehring et al., 2016).
Les MOs participent aussi à la maturation du système immunitaire. Ils stimulent les cellules dendritiques, qui jouent un rôle central dans la présentation des antigènes et dans la formation de la mémoire immunitaire. Chez des animaux jeunes, cette stimulation contribue à orienter la réponse immunitaire, évitant à la fois l’excès de réaction inflammatoire et l’hypersensibilité (Ayechu-Muruzabal et al., 2018). Certains MOs, comme le 2’-FL, favorisent par exemple la production d’anticorps et l’activation contrôlée des lymphocytes T, soutenant ainsi le développement d’une immunité fonctionnelle et durable.
b. Action indirecte des MOs sur les cellules épithéliales et immunitaires
Les MOs agissent également indirectement sur la réponse immunitaire, via leur rôle de substrats pour les bactéries intestinales bénéfiques qui les fermentent en produisant des acides gras à chaîne courte (AGCC) comme l’acétate, le propionate ou le butyrate (Yu et al., 2013 ; Bosheva et al., 2022) (figure 7D). La fermentation du 2’-FL en particulier, augmente également la production de 1,2-propanediol, un précurseur du propionate (Kostopoulos et al., 2020 ; Rumeau et al., 2025). Les AGCCs sont connus pour augmenter le renouvellement des cellules épithéliales intestinales, renforçant de fait la barrière épithéliale (Park et al., 2016). Les AGCCs jouent également un rôle immunomodulateur. Par exemple, l’acétate, le butyrate et le propionate favorisent la différenciation de lymphocytes T régulateurs, des cellules qui limitent l’inflammation et participent au maintien d’un équilibre immunitaire sain (Arpaia et al., 2013 ; Jing et al., 2023).
Les MOs exercent donc de multiples fonctions sur les différentes composantes de la barrière intestinale : le microbiote, l’épithélium et les cellules immunitaires. Ces effets dépendent étroitement de la structure des MOs.
4. Potentiel d’utilisation des oligosaccharides du lait en élevage
Dans un contexte de recherche d’alternatives visant à réduire l’utilisation des antibiotiques en élevage, le développement de solutions nutritionnelles préventives reposant sur les MOs, en raison de leur capacité à renforcer la barrière intestinale, constitue une piste prometteuse. Naturellement présents dans le lait, les MOs combinent des propriétés prébiotiques et immunomodulatrices, permettant de moduler le microbiote intestinal, de renforcer l’intégrité de la barrière intestinale et d’influencer la réponse immunitaire. Leur utilisation peut être envisagée soit par la modulation de leur concentration ou de leur profil dans le lait des femelles, soit par une supplémentation de l’alimentation des jeunes animaux, notamment en période présevrage. À ce jour, la capacité à moduler la concentration et le profil des MOs par les pratiques d’élevage chez les espèces d’intérêt zootechnique demeure peu étudiée. Les méthodologies spécifiques à leur dosage, non accessibles en routine dans les laboratoires R&D pourraient en partie expliquer le nombre limité de données disponibles (tableau 1). L’utilisation des MOs dans un cadre de supplémentation nutritionnelle nécessite, en amont, de disposer de ces molécules en quantités suffisantes.
Plusieurs approches permettent aujourd’hui de les produire : l’extraction à partir du lait, la synthèse chimique ou enzymatique, et la production par fermentation microbienne (Barile et al., 2009 ; Baumgärtner et al., 2013 ; Thum et al., 2015 ; Frohnmeyer & Elling, 2023).
L’isolement direct à partir de lait ou de lactosérum, coproduit de l’industrie fromagère, d’animaux d’élevage est une solution intéressante, mais les concentrations en MOs y sont relativement faibles (Barile et al., 2009). Les technologies nécessaires à leur extraction existent déjà, mais la purification reste difficile à cause de la présence d’autres sucres du lait, comme le lactose ou le galactose (Thum et al., 2015). La synthèse biologique des MOs, à l’aide de bactéries comme E. coli ou Bacillus subtilis, offre une alternative plus flexible et potentiellement plus durable. Cependant, ces procédés nécessitent encore des étapes de purification rigoureuses, notamment en raison de l’utilisation d’organismes génétiquement modifiés (Baumgärtner et al., 2013 ; Chen, 2015 ; Bode et al., 2016 ; Frohnmeyer & Elling, 2023). À ce jour les méthodes disponibles permettent surtout la production de MOs de petite taille, tandis que la synthèse de structures plus complexes reste un défi technologique (Chouraqui, 2021). Malgré ces limites, la combinaison de procédés biotechnologiques et de coproduits laitiers ouvre des perspectives intéressantes pour une production à plus grande échelle et une intégration future en nutrition animale.
La forme de supplémentation en MOs avant le sevrage devra être adaptée aux spécificités de chaque espèce. Si une supplémentation sous forme liquide peut être envisagée chez les espèces laitières, notamment lors de la distribution de lait artificiel, une forme solide sera probablement plus adaptée chez les espèces monogastriques telles que le porc et le lapin. Bien que l’ingestion d’aliment solide soit significative chez les lapereaux avant le sevrage (Paës et al., 2022), la consommation de creep-feed (aliment distribué aux animaux allaités) demeure relativement faible chez les porcelets en période présevrage (Choudhury et al., 2021). Afin de favoriser l’ingestion d’un aliment contenant des MOs, une piste de recherche pourrait consister à en améliorer l’attractivité (Paës et al., 2020) ou à réduire, selon des modalités restant à définir, la disponibilité du lait. Enfin, la durée effective de la supplémentation devra également être prise en compte afin d’optimiser son efficacité tout en minimisant les coûts.
Conclusion
Les MOs sont des molécules complexes, présentant une diversité structurale importante. Ces molécules participent à la protection du nouveau-né contre les agents infectieux par plusieurs mécanismes complémentaires. D’une part, ils favorisent l’implantation de bactéries bénéfiques dans l’intestin, qui occupent la niche écologique et limitent la colonisation par des pathogènes, d’autre part, ils influencent l’immunité indirectement via la production de métabolites bactériens mais aussi directement en interagissant avec les cellules immunitaires intestinales. Présents dans le lait de tous les mammifères, plusieurs travaux ont mis en évidence la multitude de facteurs pouvant influencer leur composition tels que l’espèce, la génétique, le stade de lactation ou encore les facteurs environnementaux. Les données de la littérature suggèrent une spécificité fonctionnelle des MOs liée à leur structure. Dans ce contexte, il est nécessaire de progresser sur la compréhension de cette diversité structurale et de son influence sur les fonctions des MOs. Pour ce faire, l’exploration de la littérature et l'extraction d’informations pertinentes sur la diversité des MOs d’une espèce à l’autre ou au sein d’une même espèce semblent prometteuses pour élucider le rôle structure-fonction des MOs. La supplémentation en MOs semble une piste intéressante en élevage, afin d’agir en amont du sevrage sur la maturation de la barrière intestinale, pour limiter les diarrhées et l’utilisation d’antibiotiques. Toutefois, ces molécules devront être disponibles en quantité suffisante et à un coût accessible par l’éleveur. Les modalités de distribution restent à définir tant en quantité qu’en durée. Stimuler la production de certains MOs dans le lait, par la sélection génétique ou l’alimentation maternelle, constitue également une voie intéressante pour accroître la disponibilité de ces molécules bioactives, dont les effets bénéfiques sur la santé du nouveau-né sont bien démontrés.
Contribution des auteurs
MR a rédigé la première version à partir de son mémoire de thèse (https://theses.hal.science/tel-05304492), MR, CK et SC ont complété cette première version et validé la version finale du document
Remerciements
Cette revue a été rédigée à partir du mémoire de thèse de Mathilde RUMEAU financée par le projet ANR PRC HoloOLIGO et le métaprogramme Holoflux.
Références
- Albrecht, S., Lane, J. A., Mariño, K., Al Busadah, K. A., Carrington, S. D., Hickey, R. M., & Rudd, P. M. (2014). A comparative study of free oligosaccharides in the milk of domestic animals. British Journal of Nutrition, 111(7), 1313-1328. https://doi.org/10.1017/S0007114513003772
- Aldredge, D. L., Geronimo, M. R., Hua, S., Nwosu, C. C., Lebrilla, C. B., & Barile, D. (2013). Annotation and structural elucidation of bovine milk oligosaccharides and determination of novel fucosylated structures. Glycobiology, 23(6), 664-676. https://doi.org/10.1093/glycob/cwt007
- Arpaia, N., Campbell, C., Fan, X., Dikiy, S., van der Veeken, J., deRoos, P., Liu, H., Cross, J. R., Pfeffer, K., Coffer, P. J., & Rudensky, A. Y. (2013). Metabolites produced by commensal bacteria promote peripheral regulatory T-cell generation. Nature, 504(7480), 451‑455. https://doi.org/10.1038/nature12726
- Ayechu-Muruzabal, V., van Stigt, A. H., Mank, M., Willemsen, L. E. M., Stahl, B., Garssen, J., & van’t Land, B. (2018). Diversity of human milk oligosaccharides and effects on early life immune development. Frontiers in Pediatrics, 6, 239. https://doi.org/10.3389/fped.2018.00239
- Azad, M. B., Robertson, B., Atakora, F., Becker, A. B., Subbarao, P., Moraes, T. J., Mandhane, P. J., Turvey, S. E., Lefebvre, D. L., Sears, M. R., & Bode, L. (2018). Human milk oligosaccharide concentrations are associated with multiple fixed and modifiable maternal characteristics, environmental factors, and feeding practices. The Journal of Nutrition, 148(11), 1733-1742. https://doi.org/10.1093/jn/nxy175
- Barile, D., Tao, N., Lebrilla, C. B., Coisson, J.-D., Arlorio, M., & German, J. B. (2009). Permeate from cheese whey ultrafiltration is a source of milk oligosaccharides. International Dairy Journal, 19(9), 524‑530. https://doi.org/10.1016/j.idairyj.2009.03.008
- Baumgärtner, F., Seitz, L., Sprenger, G. A., & Albermann, C. (2013). Construction of Escherichia coli strains with chromosomally integrated expression cassettes for the synthesis of 2’-fucosyllactose. Microbial Cell Factories, 12(1), 40. https://doi.org/10.1186/1475-2859-12-40
- Biddulph, C., Holmes, M., Tran, T. D., Kuballa, A., Davies, P. S. W., Koorts, P., & Maher, J. (2023). Associations between maternal nutrition and the concentrations of human milk oligosaccharides in a cohort of healthy Australian lactating women. Nutrients, 15(9), 2093. https://doi.org/10.3390/nu15092093
- Bode, L. (2012). Human milk oligosaccharides: Every baby needs a sugar mama. Glycobiology, 22(9), 1147-1162. https://doi.org/10.1093/glycob/cws074
- Bode, L., Contractor, N., Barile, D., Pohl, N., Prudden, A. R., Boons, G.-J., Jin, Y.-S., & Jennewein, S. (2016). Overcoming the limited availability of human milk oligosaccharides: Challenges and opportunities for research and application. Nutrition Reviews, 74(10), 635-644. https://doi.org/10.1093/nutrit/nuw025
- Bode, L., & Jantscher-Krenn, E. (2012). Structure-function relationships of human milk oligosaccharides. Advances in Nutrition, 3(3), 383S-391S. https://doi.org/10.3945/an.111.001404
- Boll, E. J., Lopez, D. V., Terne, M., Hessing, S., Parschat, K., & Jensen, S. R. (2024). Human milk oligosaccharides differentially support gut barrier integrity and enhance Th1 and Th17 cell effector responses in vitro. Frontiers in Immunology, 15, 1359499. https://doi.org/10.3389/fimmu.2024.1359499
- Bosheva, M., Tokodi, I., Krasnow, A., Pedersen, H. K., Lukjancenko, O., Eklund, A. C., Grathwohl, D., Sprenger, N., Berger, B., Cercamondi, C. I., & 5 HMO Study Investigator Consortium. (2022). Infant formula with a specific blend of five human milk oligosaccharides drives the gut microbiota development and improves gut maturation markers: A randomized controlled trial. Frontiers in Nutrition, 9, 920362. https://doi.org/10.3389/fnut.2022.920362
- Chatziioannou, A. C., Benjamins, E., Pellis, L., Haandrikman, A., Dijkhuizen, L., & van Leeuwen, S. S. (2021). Extraction and quantitative analysis of goat milk oligosaccharides: Composition, variation, associations, and 2′-FL variability. Journal of Agricultural and Food Chemistry, 69(28), 7851‑7862. https://doi.org/10.1021/acs.jafc.1c00499
- Chen, X. (2015). Human milk oligosaccharides (HMOS). In D. C. Baker & D. Horton (Eds.), Advances in Carbohydrate Chemistry and Biochemistry (Vol. 72, pp. 113‑190). Elsevier. https://doi.org/10.1016/bs.accb.2015.08.002
- Cheng, L., Kong, C., Walvoort, M. T. C., Faas, M. M., & de Vos, P. (2020). Human milk oligosaccharides differently modulate goblet cells under homeostatic, proinflammatory conditions and ER stress. Molecular Nutrition & Food Research, 64(5), 1900976. https://doi.org/10.1002/mnfr.201900976
- Cheng, L., Xu, Q., Yang, K., He, J., Chen, D., Du, Y., & Yin, H. (2016). Annotation of porcine milk oligosaccharides throughout lactation by hydrophilic interaction chromatography coupled with quadruple time of flight tandem mass spectrometry. Electrophoresis, 37(11), 1525-1531. https://doi.org/10.1002/elps.201500471
- Chia, L. W., Mank, M., Blijenberg, B., Bongers, R. S., van Limpt, K., Wopereis, H., Tims, S., Stahl, B., Belzer, C., & Knol, J. (2021). Cross-feeding between Bifidobacterium infantis and Anaerostipes caccae on lactose and human milk oligosaccharides. Beneficial Microbes, 12(1), 69‑84. https://doi.org/10.3920/BM2020.0005
- Choudhury, R., Middelkoop, A., Boekhorst, J., Gerrits, W. J. J., Kemp, B., Bolhuis, J. E., & Kleerebezem, M. (2021). Early life feeding accelerates gut microbiome maturation and suppresses acute post-weaning stress in piglets. Environmental Microbiology, 23(11), 7201‑7213. https://doi.org/10.1111/1462-2920.15791
- Chouraqui, J.-P. (2021). Does the contribution of human milk oligosaccharides to the beneficial effects of breast milk allow us to hope for an improvement in infant formulas? Critical Reviews in Food Science and Nutrition, 61(9), 1503–1514. https://doi.org/10.1080/10408398.2020.1761772
- Claps, S., Di Napoli, M. A., Sepe, L., Caputo, A. R., Rufrano, D., Di Trana, A., Annicchiarico, G., & Fedele, V. (2014). Sialyloligosaccharides content in colostrum and milk of two goat breeds. Small Ruminant Research, 121(1), 116-119. https://doi.org/10.1016/j.smallrumres.2013.12.024
- Combes, S., Knudsen, C., Rumeau, M., Pascal, G., Cauquil, L., Helies, V., Ruesche, J., Poli, M., Jones, E., Lencina, C., Castinel, A., Averty, E., Venot, E., Cholet, S., Beaumont, M., & Fenaille, F. (2025). The diversity of oligosaccharide composition in rabbit milk and its association with the development of the cecal microbiota and the survival of young rabbits. The Journal of Nutrition, 155(12), 4222‑4238. https://doi.org/10.1016/j.tjnut.2025.10.013
- Coppa, G. V., Zampini, L., Galeazzi, T., Facinelli, B., Ferrante, L., Capretti, R., & Orazio, G. (2006). Human Milk Oligosaccharides Inhibit the Adhesion to Caco-2 Cells of Diarrheal Pathogens: Escherichia coli, Vibrio cholerae, and Salmonella fyris. Pediatric Research, 59(3), 377‑382. https://doi.org/10.1203/01.pdr.0000200805.45593.17
- Difilippo, E., Pan, F., Logtenberg, M., Willems, R. H. A. M., Braber, S., Fink-Gremmels, J., Schols, H. A., & Gruppen, H. (2016). Milk oligosaccharide variation in sow milk and milk oligosaccharide fermentation in piglet intestine. Journal of Agricultural and Food Chemistry, 64(10), 2087-2093. https://doi.org/10.1021/acs.jafc.6b00497
- Dotz, V., Rudloff, S., Meyer, C., Lochnit, G., & Kunz, C. (2015). Metabolic fate of neutral human milk oligosaccharides in exclusively breast-fed infants. Molecular Nutrition & Food Research, 59(2), 355-364. https://doi.org/10.1002/mnfr.201400160
- Dunière, L., Renaud, J. B., Steele, M. A., Achard, C. S., Forano, E., & Chaucheyras-Durand, F. (2022). A live yeast supplementation to gestating ewes improves bioactive molecule composition in colostrum with no impact on its bacterial composition and beneficially affects immune status of the offspring. Journal of Nutritional Science, 11, e5. https://doi.org/10.1017/jns.2022.3
- Durham, S. D., Wei, Z., Lemay, D. G., Lange, M. C., & Barile, D. (2023). Creation of a milk oligosaccharide database, MilkOligoDB, reveals common structural motifs and extensive diversity across mammals. Scientific Reports, 13(1), 10345. https://doi.org/10.1038/s41598-023-36866-y
- Fong, B., Ma, K., & McJarrow, P. (2011). Quantification of bovine milk oligosaccharides using liquid chromatography–selected reaction monitoring–mass spectrometry. Journal of Agricultural and Food Chemistry, 59(18), 9788‑9795. https://doi.org/10.1021/jf202035m
- Frohnmeyer, H., & Elling, L. (2023). Enzyme cascades for the synthesis of nucleotide sugars: Updates to recent production strategies. Carbohydrate Research, 523, 108727. https://doi.org/10.1016/j.carres.2022.108727
- Garádi, Z., Dancsó, A., Piskarev, V., & Béni, S. (2025). From mother’s milk to structural insights: 1H–15N NMR analysis of Lewis X antigen-bearing oligosaccharides isolated from human milk. Carbohydrate Polymers, 347, 122534. https://doi.org/10.1016/j.carbpol.2024.122534
- Garrido, D., Dallas, D. C., & Mills, D. A. (2013). Consumption of human milk glycoconjugates by infant-associated bifidobacteria: Mechanisms and implications. Microbiology, 159, 649‑664. https://doi.org/10.1099/mic.0.064113-0
- Gibson, G. R., Hutkins, R., Sanders, M. E., Prescott, S. L., Reimer, R. A., Salminen, S. J., Scott, K., Stanton, C., Swanson, K. S., Cani, P. D., Verbeke, K., & Reid, G. (2017). Expert consensus document: The International Scientific Association for Probiotics and Prebiotics (ISAPP) consensus statement on the definition and scope of prebiotics. Nature Reviews Gastroenterology & Hepatology, 14(8), 491‑502. https://doi.org/10.1038/nrgastro.2017.75
- Goehring, K. C., Kennedy, A. D., Prieto, P. A., & Buck, R. H. (2014). Direct evidence for the presence of human milk oligosaccharides in the circulation of breastfed infants. PLoS ONE, 9(7), e101692. https://doi.org/10.1371/journal.pone.0101692
- Goehring, K. C., Marriage, B. J., Oliver, J. S., Wilder, J. A., Barrett, E. G., & Buck, R. H. (2016). Similar to those who are breastfed, infants fed a formula containing 2′-fucosyllactose have lower inflammatory cytokines in a randomized controlled trial. The Journal of Nutrition, 146(12), 2559‑2566. https://doi.org/10.3945/jn.116.236919
- Gonzalez-Prendes, R., Crooijmans, R. P. M. A., Dibbits, B., Laport, K., Breunig, S., Keijzer, P., Pellis, L., & Bovenhuis, H. (2024). Genetic and environmental factors shaping goat milk oligosaccharide composition. Journal of Dairy Science, 107(12), 11214‑11223. https://doi.org/10.3168/jds.2024-25132
- He, Y., Liu, S., Kling, D. E., Leone, S., Lawlor, N. T., Huang, Y., Feinberg, S. B., Hill, D. R., & Newburg, D. S. (2016). The human milk oligosaccharide 2 ’-fucosyllactose modulates CD14 expression in human enterocytes, thereby attenuating LPS-induced inflammation. Gut, 65(1), 33-46. https://doi.org/10.1136/gutjnl-2014-307544
- Hester, S. N., Chen, X., Li, M., Monaco, M. H., Comstock, S. S., Kuhlenschmidt, T. B., Kuhlenschmidt, M. S., & Donovan, S. M. (2013). Human milk oligosaccharides inhibit rotavirus infectivity in vitro and in acutely infected piglets. The British Journal of Nutrition, 110(7), 1233-1242. https://doi.org/10.1017/S0007114513000391
- Holscher, H. D., Bode, L., & Tappenden, K. A. (2017). Human milk oligosaccharides influence intestinal epithelial cell maturation in vitro. Journal of Pediatric Gastroenterology and Nutrition, 64(2), 296‑301. https://doi.org/10.1097/MPG.0000000000001274
- International Union of Pure and Applied Chemistry (IUPAC). (2006). Oligosaccharides. In IUPAC Compendium of Chemical Terminology (3rd ed.). https://doi.org/10.1351/goldbook.O04289
- Jin, C., Lundstrøm, J., Korhonen, E., Luis, A. S., & Bojar, D. (2023). Breast milk oligosaccharides contain immunomodulatory glucuronic acid and lacdinac. Molecular & Cellular Proteomics, 22(9), 100635. https://doi.org/10.1016/j.mcpro.2023.100635
- Jing, X., Lyu, J., & Xiong, J. (2023). Acetate regulates GAPDH acetylation and T helper 1 cell differentiation. Molecular Biology of the Cell, 34(7), br10. https://doi.org/10.1091/mbc.E23-02-0070
- Karlsson, K.-A. (1989). Animal glycosphingolipids as membrane attachment sites for bacteria. Annual Review of Biochemistry, 58(1), 309‑350. https://doi.org/10.1146/annurev.bi.58.070189.001521
- Kijner, S., Cher, A., & Yassour, M. (2022). The infant gut commensal bacteroides dorei presents a generalized transcriptional response to various human milk oligosaccharides. Frontiers in Cellular and Infection Microbiology, 12, 854122. https://doi.org/10.3389/fcimb.2022.854122
- Kijner, S., Ennis, D., Shmorak, S., Florentin, A., & Yassour, M. (2024). CRISPR-Cas-based identification of a sialylated human milk oligosaccharides utilization cluster in the infant gut commensal Bacteroides dorei. Nature Communications, 15(1), 105. https://doi.org/10.1038/s41467-023-44437-y
- Kobata, A. (2017). Structures, classification, and biosynthesis of human milk oligosaccharides. In (M. McGuire, M. A. McGuire, & L. Bode (Eds.), Prebiotics and probiotics in human milk: Origins and functions of milk-borne oligosaccharides and bacteria (pp. 17-44). Elsevier. https://doi.org/10.1016/B978-0-12-802725-7.00002-6
- Kostopoulos, I., Elzinga, J., Ottman, N., Klievink, J. T., Blijenberg, B., Aalvink, S., Boeren, S., Mank, M., Knol, J., de Vos, W. M., & Belzer, C. (2020). Akkermansia muciniphila uses human milk oligosaccharides to thrive in the early life conditions in vitro. Scientific Reports, 10(1), 14330. https://doi.org/10.1038/s41598-020-71113-8
- Lane, J. A., O’Callaghan, J., Carrington, S. D., & Hickey, R. M. (2013). Transcriptional response of HT-29 intestinal epithelial cells to human and bovine milk oligosaccharides. British Journal of Nutrition, 110(12), 2127‑2137. https://doi.org/10.1017/S0007114513001591
- Le Bourgot, C., Lollier, V., Richer, Y., Thoulouze, L., Svilar, L., Le Gall, S., Blat, S., & Le Huërou-Luron, I. (2024). Maternal short chain fructo-oligosaccharides supplementation during late gestation and lactation influences milk components and offspring gut metabolome: A pilot study. Scientific Reports, 14(1), 4236. https://doi.org/10.1038/s41598-024-54813-3
- Le Gall, S., Thoulouze, L., Richer, Y., Lepvrier, E., & Le Huërou-Luron, I. (2025). Exploring animals and human milk oligosaccharides: A comprehensive analysis using hydrophilic interaction liquid chromatography coupled with fluorescent and mass spectrometry detectors. Journal of Food Composition and Analysis, 147, 108074. https://doi.org/10.1016/j.jfca.2025.108074
- Lu, J., Zhang, Y., Song, B., Zhang, S., Pang, X., Sari, R. N., Liu, L., Wang, J., & Lv, J. (2020). Comparative analysis of oligosaccharides in Guanzhong and Saanen goat milk by using LC-MS/MS. Carbohydrate Polymers, 235. https://doi.org/10.1016/j.carbpol.2020.115965
- Manthey, C. F., Autran, C. A., Eckmann, L., & Bode, L. (2014). Human milk oligosaccharides protect against enteropathogenic Escherichia coli attachment in vitro and EPEC colonization in suckling mice. Journal of Pediatric Gastroenterology and Nutrition, 58(2), 165-168. https://doi.org/10.1097/MPG.0000000000000172
- Marcobal, A., Barboza, M., Sonnenburg, E. D., Pudlo, N., Martens, E. C., Desai, P., Lebrilla, C. B., Weimer, B. C., Mills, D. A., German, J. B., & Sonnenburg, J. L. (2011). Bacteroides in the infant gut consume milk oligosaccharides via mucus-utilization pathways. Cell Host & Microbe, 10(5), 507‑514. https://doi.org/10.1016/j.chom.2011.10.007
- Marino, K., Lane, J. A., Abrahams, J. L., Struwe, W. B., Harvey, D. J., Marotta, M., Hickey, R. M., & Rudd, P. M. (2011). Method for milk oligosaccharide profiling by 2-aminobenzamide labeling and hydrophilic interaction chromatography. Glycobiology, 21(10), 1317-1330. https://doi.org/10.1093/glycob/cwr067
- Martinez-Ferez, A., Rudloff, S., Guadix, A., Henkel, C. A., Pohlentz, G., Boza, J. J., Guadix, E. M., & Kunz, C. (2006). Goats’ milk as a natural source of lactose-derived oligosaccharides: Isolation by membrane technology. International Dairy Journal, 16(2), 173-181. https://doi.org/10.1016/j.idairyj.2005.02.003
- Martín-Ortiz, A., Barile, D., Salcedo, J., Moreno, F. J., Clemente, A., Ruiz-Matute, A. I., & Sanz, M. L. (2017). Changes in Caprine Milk Oligosaccharides at Different Lactation Stages Analyzed by High Performance Liquid Chromatography Coupled to Mass Spectrometry. Journal of Agricultural and Food Chemistry, 65(17), 35233531. https://doi.org/10.1021/acs.jafc.6b05104
- McJarrow, P., & van Amelsfort-Schoonbeek, J. (2004). Bovine sialyl oligosaccharides: Seasonal variations in their concentrations in milk, and a comparison of the colostrums of Jersey and Friesian cows. International Dairy Journal, 14(7), 571-579. https://doi.org/10.1016/j.idairyj.2003.11.006
- McNaught, A. D. (1996). Nomenclature of carbohydrates (IUPAC Recommendations 1996). Pure and Applied Chemistry, 68(10), 1919‑2008. https://doi.org/10.1351/pac199668101919
- Milani, C., Duranti, S., Bottacini, F., Casey, E., Turroni, F., Mahony, J., Belzer, C., Delgado Palacio, S., Arboleya Montes, S., Mancabelli, L., Lugli, G. A., Rodriguez, J. M., Bode, L., de Vos, W., Gueimonde, M., Margolles, A., van Sinderen, D., & Ventura, M. (2017). The first microbial colonizers of the human gut: Composition, activities, and health implications of the infant gut microbiota. Microbiology and Molecular Biology Reviews, 81(4), e00036-17. https://doi.org/10.1128/MMBR.00036-17
- Mokhtari, P., Schmidt, K. A., Zamanian, H., Babaei, M., Machle, C. J., Trifonova, D., Alderete, T. L., Holzhausen, E. A., Ottino-González, J., Chalifour, B. N., Jones, R. B., Furst, A., Yonemitsu, C., Bode, L., & Goran, M. I. (2024). Maternal diet associated with oligosaccharide abundances in human milk from latina mothers. Nutrients, 16(12), 1795. https://doi.org/10.3390/nu16121795
- Moore, R. E., Xu, L. L., & Townsend, S. D. (2021). Prospecting human milk oligosaccharides as a defense against viral infections. ACS Infectious Diseases, 7(2), 254‑263. https://doi.org/10.1021/acsinfecdis.0c00807
- Mudd, A. T., Salcedo, J., Alexander, L. S., Johnson, S. K., Getty, C. M., Chichlowski, M., Berg, B. M., Barile, D., & Dilger, R. N. (2016). Porcine milk oligosaccharides and sialic acid concentrations vary throughout lactation. Frontiers in Nutrition, 3. https://doi.org/10.3389/fnut.2016.00039
- Nakamura, T., Kawase, H., Kimura, K., Watanabe, Y., Ohtani, M., Arai, I., & Urashima, T. (2003). Concentrations of sialyloligosaccharides in bovine colostrum and milk during the prepartum and early lactation. Journal of Dairy Science, 86(4), 1315-1320. https://doi.org/10.3168/jds.S0022-0302(03)73715-1
- Noll, A. J., Yu, Y., Lasanajak, Y., Duska-McEwen, G., Buck, R. H., Smith, D. F., & Cummings, R. D. (2016). Human DC-SIGN binds specific human milk glycans. Biochemical Journal, 473(10), 1343‑1353. https://doi.org/10.1042/BCJ20160046
- Paës, C., Fortun-Lamothe, L., Coureaud, G., Bébin, K., Duperray, J., Gohier, C., Guené-Grand, E., Rebours, G., Aymard, P., Bannelier, C., Debrusse, A. M., Gidenne, T., & Combes, S. (2020). Insights into suckling rabbit feeding behaviour: Acceptability of different creep feed presentations and attractiveness for sensory feed additives. Animal, 14(8), 1629‑1637. https://doi.org/10.1017/s1751731120000038
- Paës, C., Gidenne, T., Bébin, K., Duperray, J., Gohier, C., Guené-Grand, E., Rebours, G., Barilly, C., Gabinaud, B., Cauquil, L., Castinel, A., Pascal, G., Darbot, V., Aymard, P., Debrusse, A.-M., Beaumont, M., & Combes, S. (2022). Early introduction of plant polysaccharides drives the establishment of rabbit gut bacterial ecosystems and the acquisition of microbial functions. mSystems, 7(3). https://doi.org/10.1128/msystems.00243-22
- Paone, P., Latousakis, D., Terrasi, R., Vertommen, D., Jian, C., Borlandelli, V., Suriano, F., Johansson, M. E. V., Puel, A., Bouzin, C., Delzenne, N. M., Salonen, A., Juge, N., Florea, B. I., Muccioli, G. G., Overkleeft, H., Van Hul, M., & Cani, P. D. (2024). Human milk oligosaccharide 2’-fucosyllactose protects against high-fat diet-induced obesity by changing intestinal mucus production, composition and degradation linked to changes in gut microbiota and faecal proteome profiles in mice. Gut, 73(10), 1632‑1649. https://doi.org/10.1136/gutjnl-2023-330301
- Park, J.-h., Kotani, T., Konno, T., Setiawan, J., Kitamura, Y., Imada, S., Usui, Y., Hatano, N., Shinohara, M., Saito, Y., Murata, Y., & Matozaki, T. (2016). Promotion of intestinal epithelial cell turnover by commensal bacteria: Role of short-chain fatty acids. PLoS ONE, 11(5), e0156334. https://doi.org/10.1371/journal.pone.0156334
- Qiao, Y., Feng, J., Yang, J., & Gu, G. (2013). The relationship between dietary vitamin A intake and the levels of sialic acid in the breast milk of lactating women. Journal of nutritional science and vitaminology, 59(4), 347-351. https://doi.org/10.3177/jnsv.59.347
- Robinson, R. C., Poulsen, N. A., Colet, E., Duchene, C., Larsen, L. B., & Barile, D. (2019). Profiling of aminoxyTMT-labeled bovine milk oligosaccharides reveals substantial variation in oligosaccharide abundance between dairy cattle breeds. Scientific Reports, 9(1), 5465. https://doi.org/10.1038/s41598-019-41956-x
- Ruiz-Palacios, G. M., Cervantes, L. E., Ramos, P., Chavez-Munguia, B., & Newburg, D. S. (2003). Campylobacter jejuni Binds Intestinal H(O) Antigen (Fucα1, 2Galβ1, 4GlcNAc), and Fucosyloligosaccharides of Human Milk Inhibit Its Binding and Infection. Journal of Biological Chemistry, 278(16), 14112‑14120. https://doi.org/10.1074/jbc.M207744200
- Rumeau, M., Chadi, S., Pepke, F., Beaumont, M., Vicente, C. M., Juppeau, A., Vandecasteele, C., Cauquil, L., Pascal, G., Langella, P., Knudsen, C., Combes, S., & Martín, R. (2025). Structure-dependent degradation of milk oligosaccharides by newly isolated intestinal commensal bacterial strains from suckling piglets and rabbits. BMC Microbiology, 25(1), 513. https://doi.org/10.1186/s12866-025-04205-y
- Rumeau, M., Fenaille, F., Girard, A., Loux, V., Ba, M., Nédellec, C., Deléger, L., Bossy, R., Aubin, S., Knudsen, C., & Combes, S. (2024). MilkOligoThesaurus, a dataset of mammalian milk oligosaccharide synonyms. Data in Brief, 54, 110404. https://doi.org/10.1016/j.dib.2024.110404
- Salcedo, J., Frese, S. A., Mills, D. A., & Barile, D. (2016). Characterization of porcine milk oligosaccharides during early lactation and their relation to the fecal microbiome. Journal of Dairy Science, 99(10), 7733-7743. https://doi.org/10.3168/jds.2016-10966
- Salli, K., Hirvonen, J., Siitonen, J., Ahonen, I., Anglenius, H., & Maukonen, J. (2021). Selective utilization of the human milk oligosaccharides 2′-fucosyllactose, 3-fucosyllactose, and difucosyllactose by various probiotic and pathogenic bacteria. Journal of Agricultural and Food Chemistry, 69(1), 170‑182. https://doi.org/10.1021/acs.jafc.0c06041
- Seferovic, M. D., Mohammad, M., Pace, R. M., Engevik, M., Versalovic, J., Bode, L., Haymond, M., & Aagaard, K. M. (2020). Maternal diet alters human milk oligosaccharide composition with implications for the milk metagenome. Scientific Reports, 10(1). https://doi.org/10.1038/s41598-020-79022-6
- Selma-Royo, M., González, S., Gueimonde, M., Chang, M., Fürst, A., Martínez-Costa, C., Bode, L., & Collado, M. (2022). Maternal diet is associated with human milk oligosaccharide profile. Molecular Nutrition & Food Research, 66(15). https://doi.org/10.1002/mnfr.202200058
- Singh, R. P., Niharika, J., Kondepudi, K. K., Bishnoi, M., & Tingirikari, J. M. R. (2022). Recent understanding of human milk oligosaccharides in establishing infant gut microbiome and roles in immune system. Food Research International, 151, 110884. https://doi.org/10.1016/j.foodres.2021.110884
- Smith, D. F., & Cummings, R. D. (2017). Analytical methods to characterize human milk oligosaccharides. In (M. McGuire, M. A. McGuire, & L. Bode (Eds.), Prebiotics and probiotics in human milk: Origins and Functions of Milk-Borne Oligosaccharides and Bacteria (pp. 141‑168). Elsevier. https://doi.org/10.1016/B978-0-12-802725-7.00004-X
- Sodhi, C. P., Wipf, P., Yamaguchi, Y., Fulton, W. B., Kovler, M., Niño, D. F., Zhou, Q., Banfield, E., Werts, A. D., Ladd, M. R., Buck, R. H., Goehring, K. C., Prindle, T. J., Wang, S., Jia, H., Lu, P., & Hackam, D. J. (2021). The human milk oligosaccharides 2’-fucosyllactose and 6’-sialyllactose protect against the development of necrotizing enterocolitis by inhibiting toll-like receptor 4 signaling. Pediatric Research, 89(1), 91-101. https://doi.org/10.1038/s41390-020-0852-3
- Sun, W., Tao, L., Qian, C., Xue, P.-p., Du, S.-s., & Tao, Y.-n. (2025). Human milk oligosaccharides: Bridging the gap in intestinal microbiota between mothers and infants. Frontiers in Cellular and Infection Microbiology, 14. https://doi.org/10.3389/fcimb.2024.1386421
- Tao, N., Ochonicky, K. L., German, J. B., Donovan, S. M., & Lebrilla, C. B. (2010). Structural determination and daily variations of porcine milk oligosaccharides. Journal of Agricultural and Food Chemistry, 58(8), 4653-4659. https://doi.org/10.1021/jf100398u
- Thongaram, T., Hoeflinger, J. L., Chow, J., & Miller, M. J. (2017). Human milk oligosaccharide consumption by probiotic and human-associated bifidobacteria and lactobacilli. Journal of Dairy Science, 100(10), 7825-7833. https://doi.org/10.3168/jds.2017-12753
- Thum, C., Cookson, A., McNabb, W. C., Roy, N. C., & Otter, D. (2015). Composition and enrichment of caprine milk oligosaccharides from New Zealand Saanen goat cheese whey. Journal of Food Composition and Analysis, 42, 30‑37. https://doi.org/10.1016/j.jfca.2015.01.022
- Thurl, S., Henker, J., Siegel, M., Tovar, K., & Sawatzki, G. (1997). Detection of four human milk groups with respect to Lewis blood group dependent oligosaccharides. Glycoconjugate Journal, 14(7), 795-799. https://doi.org/10.1023/A:1018529703106
- Thurl, S., Munzert, M., Boehm, G., Matthews, C., & Stahl, B. (2017). Systematic review of the concentrations of oligosaccharides in human milk. Nutrition Reviews, 75(11), 920‑933. https://doi.org/10.1093/nutrit/nux044
- Trevisi, P., Luise, D., Won, S., Salcedo, J., Bertocchi, M., Barile, D., & Bosi, P. (2020). Variations in porcine colostrum oligosaccharide composition between breeds and in association with sow maternal performance. Journal of Animal Science and Biotechnology, 11(1). https://doi.org/10.1186/s40104-020-0430-x
- Triantis, V., Bode, L., & van Neerven, R. J. J. (2018). Immunological effects of human milk oligosaccharides. Frontiers in Pediatrics, 6, 190. https://doi.org/10.3389/fped.2018.00190
- Urashima, T., Kitaoka, M., Asakuma, S., & Messer, M. (2009). Milk oligosaccharides. In P. McSweeney & P. F. Fox (Eds.), Advanced Dairy Chemistr: Volume 3: Lactose, Water, Salts and Minor Constituents (3rd edition, pp. 295‑349). Springer. https://doi.org/10.1007/978-0-387-84865-5_8
- Urrutia-Baca, V. H., Gutiérrez-Uribe, J. A., Ramos-Parra, P. A., Domínguez-Uscanga, A., Rodriguez-Gutierrez, N. A., Chavez-Caraza, K. L., Martinez-Cano, I., Padilla-Garza, A. S., Ruiz-Villarreal, E. G., Espiricueta-Candelaria, F., & Chuck-Hernández, C. (2024). Exploring the impact of maternal factors and dietary habits on human milk oligosaccharide composition in early breastfeeding among Mexican women. Scientific Reports, 14(1), 14685. https://doi.org/10.1038/s41598-024-63787-1
- Varki, A., Cummings, R. D., Aebi, M., Packer, N. H., Seeberger, P. H., Esko, J. D., Stanley, P., Hart, G., Darvill, A., Kinoshita, T., Prestegard, J. J., Schnaar, R. L., Freeze, H. H., Marth, J. D., Bertozzi, C. R., Etzler, M. E., Frank, M., Vliegenthart, J. F., Lütteke, T., … Kornfeld, S. (2015). Symbol nomenclature for graphical representations of glycans. Glycobiology, 25(12), 1323‑1324. https://doi.org/10.1093/glycob/cwv091
- Viggiano, D., Ianiro, G., Vanella, G., Bibbò, S., Bruno, G., Simeone, G., & Mele, G. (2015). Gut barrier in health and disease: Focus on childhood. European Review for Medical and Pharmacological Sciences, 19(6), 1077‑1085. https://www.europeanreview.org/article/8708
- Wang, Y., Zou, Y., Wang, J., Ma, H., Zhang, B., & Wang, S. (2020). The protective effects of 2’-fucosyllactose against E. coli O157 infection are mediated by the regulation of gut microbiota and the inhibition of pathogen adhesion. Nutrients, 12(5), 1284. https://doi.org/10.3390/nu12051284
- Wei, J., Wang, Z. A., Wang, B., Jahan, M., Wang, Z., Wynn, P. C., & Du, Y. (2018). Characterization of porcine milk oligosaccharides over lactation between primiparous and multiparous female pigs. Scientific Reports, 8(1), 4688. https://doi.org/10.1038/s41598-018-23025-x
- Weichert, S., Koromyslova, A., Singh, B. K., Hansman, S., Jennewein, S., Schroten, H., & Hansman, G. S. (2016). Structural basis for norovirus inhibition by human milk oligosaccharides. Journal of Virology, 90(9), 4843-4848. https://doi.org/10.1128/JVI.03223-15
- Wu, R. Y., Li, B., Koike, Y., Määttänen, P., Miyake, H., Cadete, M., Johnson‐Henry, K. C., Botts, S. R., Lee, C., Abrahamsson, T. R., Landberg, E., Pierro, A., & Sherman, P. M. (2019). Human milk oligosaccharides increase mucin expression in experimental necrotizing enterocolitis. Molecular Nutrition & Food Research, 63(3), 1800658. https://doi.org/10.1002/mnfr.201800658
- Xiao, L., van De Worp, W. R., Stassen, R., van Maastrigt, C., Kettelarij, N., Stahl, B., Blijenberg, B., Overbeek, S. A., Folkerts, G., Garssen, J., & van’t Land, B. (2019). Human milk oligosaccharides promote immune tolerance via direct interactions with human dendritic cells. European Journal of Immunology, 49(7), 1001‑1014. https://doi.org/10.1002/eji.201847971
- Yao, Q., Gao, Y., Wang, F., Delcenserie, V., Wang, J., & Zheng, N. (2024). Label-Free quantitation of milk oligosaccharides from different mammal species and heat treatment influence. Food Chemistry, 430, 136977. https://doi.org/10.1016/j.foodchem.2023.136977
- Yu, Y., Mishra, S., Song, X., Lasanajak, Y., Bradley, K. C., Tappert, M. M., Air, G. M., Steinhauer, D. A., Halder, S., Cotmore, S., Tattersall, P., Agbandje-McKenna, M., Cummings, R. D., & Smith, D. F. (2012). Functional glycomic analysis of human milk glycans reveals the presence of virus receptors and embryonic stem cell biomarkers. Journal of Biological Chemistry, 287(53), 44784‑44799. https://doi.org/10.1074/jbc.M112.425819
- Yu, Z.-T., Chen, C., & Newburg, D. S. (2013). Utilization of major fucosylated and sialylated human milk oligosaccharides by isolated human gut microbes. Glycobiology, 23(11), 1281-1292. https://doi.org/10.1093/glycob/cwt065
- Zuurveld, M., Ayechu-Muruzabal, V., Folkerts, G., Garssen, J., van‘t Land, B., & Willemsen, L. E. M. (2023). Specific human milk oligosaccharides differentially promote Th1 and regulatory responses in a CpG-activated epithelial/immune cell coculture. Biomolecules, 13(2), 263. https://doi.org/10.3390/biom13020263
Résumé
Les troubles digestifs en élevage sont fréquents autour du sevrage, en lien avec le développement incomplet de la barrière intestinale. Ces troubles entraînent une utilisation d’antibiotiques et des pertes économiques importantes. Afin de limiter les risques d’antibiorésistance, des solutions nutritionnelles, utilisées en amont du sevrage, doivent être développées pour préserver la santé digestive des jeunes animaux d’élevage. Parmi elles, les oligosaccharides du lait, composés bioactifs, exercent de nombreuses fonctions bénéfiques dans le tractus intestinal. Ces fonctions dépendent toutefois de la structure chimique de ces molécules. De plus, la composition en oligosaccharides du lait, tant en termes de structures chimiques que de concentrations, est particulièrement variable entre les espèces, au sein d’une même espèce, mais également chez un même individu au cours de la lactation. Afin de mieux appréhender le rôle de ces composés, il est primordial de comprendre d’une part la nature des variations de structure chimique de ces molécules et d’autre part l’origine des variations de la composition en oligosaccharides des laits des animaux d’élevage. À terme, ces oligosaccharides du lait pourraient représenter une solution nutritionnelle applicable en élevage pour préserver la santé du jeune dans un contexte de réduction de l’usage des antibiotiques.
Pièces jointes
Pas de document complémentaire pour cet articleStatistiques de l'article
 Vues: 7
Articles les plus lus par le même auteur ou la même autrice
- Sylvie COMBES, Thierry GIDENNE, Samuel BOUCHER, Laurence FORTUN-LAMOTHE, Gérard BOLET, Gérard COUREAUD, Pour des lapereaux plus robustes au sevrage : des bases biologiques aux leviers d’action en élevage , INRAE Productions Animales: Vol. 31 No 2 (2018)
- Christelle KNUDSEN, Cécile BONNEFONT, Laurence FORTUN-LAMOTHE, Karine RICAUD, Xavier FERNANDEZ, L'engraissement spontané du foie ches les palmipèdes : état des lieux et perspectives de recherche , INRAE Productions Animales: Vol. 31 No 2 (2018)
- Laurence FORTUN-LAMOTHE, Anne COLLIN, Sylvie COMBES, Stéphane FERCHAUD, Karine GERMAIN, Laurence GUILLOTEAU, Mélanie GUNIA, Nathalie LEFLOC’H, Claire MANOLI, Lucile MONTAGNE, Davi SAVIETTO, Principes, cadre d'analyse et leviers d'action à l’échelle de l’élevage pour une gestion intégrée de la santé chez les animaux monogastriques , INRAE Productions Animales: Vol. 35 No 4 (2022): Rationaliser l'usage des médicaments en élevage
- Charlotte PAËS, Thierry GIDENNE, Karine BÉBIN, Joël DUPERRAY, Charly GOHIER, Emeline GUENÉ-GRAND, Gwénaël REBOURS, Patrick AYMARD, Anne-Marie DEBRUSSE, Laurence FORTUN-LAMOTHE, Martin BEAUMONT, Sylvie COMBES, L’introduction précoce d’aliment solide au début de la vie, une stratégie de pilotage du microbiote pour construire et préserver la santé du lapin , INRAE Productions Animales: Vol. 36 No 3 (2023): Dossier « Efficience alimentaire des bovins allaitants » & Articles hors dossier